세포 Cell
세포는 생물을 이루는 구조와 기능의 기본 단위다. 막을 사이에 두고 물질을 주고받으며, 에너지를 얻고 필요한 물질을 만든다. 사람의 몸에서는 여러 종류의 세포가 세포외기질과 함께 조직을 이룬다.
세포라는 단위
세포(細胞; cell)는 생물의 구조와 생명 활동을 이루는 기본 단위다. 막으로 둘러싸인 내부에서 물질을 바꾸고, 에너지를 이용하며, 유전정보에 따라 분자를 만들어 낸다. 세균처럼 세포 하나가 개체인 생물도 있고, 사람처럼 여러 종류의 세포가 조직과 기관을 이루는 생물도 있다. 사람의 몸에서는 세포의 형태와 기능이 주변 세포, 기질과의 관계 속에서 유지된다.
손가락 끝의 피부, 피 한 방울, 입안에서 떨어져 나온 상피에는 저마다 다른 모양의 세포가 있다. 얇게 펼쳐진 세포도 있고, 둥근 세포도 있으며, 적혈구처럼 중심이 옅게 보이는 원반 모양도 있다. 교과서의 둥근 세포 그림은 여러 구조를 한 화면에 설명하기 위한 도식이다. 실제 세포에서는 종류와 상태에 따라 크기, 핵의 모양, 세포소기관의 양과 위치가 달라진다.
세포막은 안팎을 가르며 물질 교환이 이루어지는 경계이다. 막으로 둘러싸인 세포 내부에는 이온과 수용성 분자, 여러 고분자와 세포 구조가 자리한다. 아울러 살아 있는 세포에서는 물질의 합성과 분해, 막을 통한 수송이 이어지며 내부 조성이 조절된다. 세포 안팎의 농도가 서로 다를 수 있는 것은 이 경계의 투과성이 물질마다 다르고, 막을 가로질러 물질을 옮기는 단백질이 작동하기 때문이다.
전형적인 세포를 소개할 때에는 세포막·세포질·유전물질·리보솜을 공통 구조로 든다. 이들 구조의 구성은 세포의 종류와 성숙 단계에 따라 달라진다. 사람의 성숙 적혈구에는 핵과 미토콘드리아가 없지만 세포막과 대사 기능이 남아 있다. 골격근의 근섬유는 여러 세포가 융합한 결과로 핵을 여럿 가진다.
사람의 세포는 동물의 진핵세포에 속하며, 세균·고세균·식물·균류의 세포와 공통된 구조 및 각 계통의 특성을 함께 지닌다. 세포 전체를 살피는 세포생물학, 세포들의 배열과 기질을 살피는 조직학, 그 배열이 이루는 장기의 형태를 살피는 해부학은 관찰 크기와 질문이 겹치면서도 다르다. 같은 소장에서도 세포생물학은 막을 통한 흡수를, 조직학은 상피와 결합조직의 배열을, 해부학은 장의 위치와 연결을 다룰 수 있다.
크기와 모양을 읽는 법
같은 단위로 놓고, 같은 비율로 비교하기
| 구형 가정 | 상대 표면적 | 상대 부피 |
|---|---|---|
| 반지름 r | 1 | 1 |
| 반지름 2r | 4 | 8 |
세포의 길이를 나타낼 때 자주 쓰는 단위는 마이크로미터(micrometre; μm)다. 1 μm는 1 mm의 천분의 일이고, 1 nm는 1 μm의 천분의 일이다. 세포 전체의 지름에는 주로 μm를, 막의 두께에는 nm를 쓴다. 현미경 사진의 크기를 비교할 때에는 화면에서 보이는 지름보다 사진에 표시된 축척 막대가 기준이 된다.
많은 세균은 마이크로미터 수준이고 많은 동물세포는 그보다 크다. 크기 범위는 서로 겹쳐서, 아주 큰 세균과 작은 진핵세포도 존재한다. 신경세포에서는 세포체의 지름과 길게 뻗은 축삭의 길이가 전혀 다른 수치가 된다. 납작한 세포에서는 가로 길이를, 둥근 세포에서는 지름을, 길쭉한 세포에서는 장축을 잴 수 있다. 같은 크기 표기라도 측정한 방향과 부위에 따라 그 값이 달라지는 셈이다.
세포가 커질 때 표면과 내부는 같은 비율로 증가하지 않는다. 구형이라는 가정 아래 반지름을 두 배로 늘리면 표면적은 네 배, 부피는 여덟 배가 된다. 막을 통과하는 교환 면적에 비해 내부 부피가 더 빠르게 커지는 셈이다. 실제 세포는 구형에 고정되어 있지 않다. 납작해지거나 길어지고, 표면에 돌기를 형성하면 같은 부피에서도 교환 면적과 이동 거리가 달라진다. 표면적과 부피의 관계는 세포의 크기에 영향을 주는 조건 중 하나이며, 실제 크기에는 형태와 물질 수송 방식도 관여한다.
모양에는 세포골격과 주변 환경이 함께 관여한다. 세포가 배양 접시에 붙으면 표면을 따라 퍼지고, 조직에서 떨어뜨려 부유시키면 둥글게 보일 수 있다. 한 종류의 세포가 움직이는 동안에도 앞쪽의 돌기와 뒤쪽의 형태가 계속 바뀐다. 배양한 세포, 살아 움직이는 세포, 고정한 조직 절편은 각기 다른 상태의 형태를 보여 준다.
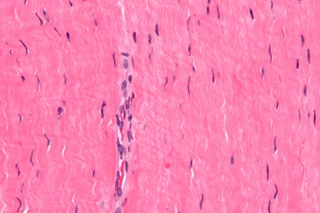
조직 절편은 입체 구조를 얇게 자른 한 단면이다. 길쭉한 세포를 가로로 자르면 둥글게, 비스듬히 자르면 타원처럼 보일 수 있다. 핵을 지나지 않는 높이에서 잘린 단면에는 핵이 나타나지 않는다. 핵이 사진에 나타나는지는 세포의 상태뿐 아니라 절편이 지난 위치에도 달려 있다. 연속 절편이나 서로 다른 초점면에서는 한 단면에 잡히지 않았던 핵이 드러나기도 한다.
코르크의 작은 방에서 세포설까지
훅이 남긴 코르크 관찰 도판
Robert Hooke의 관찰·그림을 바탕으로 한 동판화 · 출처 · Public domain · 원본 비율·색상 유지, 이미지 내용 변경 없음.
로버트 훅(Robert Hooke, 1635–1703)은 1665년 『마이크로그라피아』(Micrographia)의 관찰 XVIII에서 코르크의 미세구조를 기록했다. 그는 코르크 표면을 매끈하게 자른 뒤 날카로운 칼로 매우 얇은 조각을 떠냈다. 밝은 코르크가 잘 드러나도록 검은 받침에 놓고, 렌즈로 빛을 모아 비췄다. 그는 시료를 얇게 만드는 과정과 빛을 모아 비추는 방법을 원문에 함께 적었다.
훅이 적은 것은 벌집과 닮은 구멍, 얇은 벽, 상자처럼 분리된 공간이었다. 그는 이 작은 공간을 “pores, or cells”라고 불렀다. 오늘날의 관점에서 이 코르크 조직의 두드러진 윤곽은 죽은 세포들이 남긴 벽으로 설명된다. 원문에는 작은 칸의 크기를 어림하고 그 다공성이 코르크의 물성과 어떻게 연결되는지 추론한 대목도 있다.
훅의 코르크 관찰 뒤, 19세기의 세포설은 서로 다른 생물과 조직의 관찰을 공통 구조로 묶는 작업에서 형성됐다. 마티아스 슐라이덴(Matthias Schleiden)은 1838년 식물의 세포 구성을 논했고, 테오도어 슈반(Theodor Schwann)은 1839년 동물로 논의를 확장했다. 두 사람의 초기 설명에는 세포가 생겨나는 방식에 관한 잘못된 추정도 포함되어 있었다.
세포분열의 관찰은 기존 세포에서 새 세포가 생긴다는 설명의 근거가 됐다. 로베르트 레마크(Robert Remak)의 연구와 루돌프 피르호(Rudolf Virchow)가 널리 알린 명제는 이 문제와 연결된다. 세포라는 명칭, 동식물에 걸친 일반화, 세포분열의 관찰은 이처럼 서로 다른 시기의 연구를 거쳐 이어졌다.
현재 입문서에서 말하는 세포설은 생물이 세포로 구성되고, 세포가 기본 구조·기능 단위이며, 새 세포가 기존 세포에서 이어진다는 설명이다. 이는 현재 생물의 구성과 연속성을 다룬다. 생명 기원에서 최초의 세포가 어떻게 형성됐는지는 별도의 역사적·실험적 문제다.
원핵세포와 진핵세포
세균·고세균, 동물, 식물과 균류
| 비교 대상 | 핵막으로 둘러싸인 핵 | 세포벽·엽록체 |
|---|---|---|
| 세균·고세균 | 없음. 핵양체에 주된 유전물질 | 벽의 유무와 조성은 계통에 따라 다름 |
| 동물의 전형적 세포 | 있음. 성숙 적혈구 등의 예외 | 세포벽·엽록체 없음 |
| 식물의 전형적 세포 | 있음 | 세포벽 있음. 엽록체는 조직과 상태에 따라 다름 |
| 균류 | 있음 | 세포벽 있음. 엽록체 없음 |
원핵세포(prokaryotic cell)와 진핵세포(eukaryotic cell)를 가르는 대표적인 구조는 핵막으로 둘러싸인 핵이다. 세균과 고세균의 유전물질은 핵막 안에 들어 있지 않으며, 주된 염색체가 놓이는 영역을 핵양체(nucleoid)라 부른다. 진핵생물에는 동물·식물·균류와 다양한 단세포 생물이 포함된다.
원핵세포에는 핵막이 없지만 DNA의 복제, RNA의 합성, 리보솜을 통한 단백질 합성이 이루어진다. 세포막을 통한 물질 이동과 에너지 대사도 수행한다. 고세균은 이름에 “세균”이 들어가도 세균과 구별되는 계통이며, 세포막 지질과 유전자 발현 장치 등에서 차이가 있다.
진핵세포의 내부에는 핵, 소포체, 골지체, 미토콘드리아처럼 막으로 구획된 구조가 발달해 있다. 같은 세포 안에서도 구획마다 조성, 산도, 효소가 달라질 수 있다. 분해 효소를 한 구획에 모으고, 단백질의 합성과 변형을 특정 경로로 연결하는 데 이 구획화가 관여한다. 리보솜과 세포골격은 막에 싸이지 않은 구조로, 각각 단백질 합성과 형태 유지·수송 등에 참여한다.
동물세포에는 식물세포처럼 세포벽이 없다. 식물에서는 세포벽과 큰 액포가 형태와 팽압에 관여하고, 광합성 조직에는 엽록체가 발달한다. 뿌리처럼 대개 광합성을 하지 않는 조직에서는 엽록체의 발달 양상이 다르다. 균류도 진핵생물이지만 식물과 세포벽의 조성이 다르고 엽록체를 갖지 않는다.
원핵생물과 진핵생물의 분류에는 생물의 계통과 세포 구조가 함께 반영된다. 사람의 성숙 적혈구는 진핵생물의 세포가 분화하는 과정에서 핵을 잃은 사례다. 진핵세포 안의 미토콘드리아는 자체 DNA와 리보솜을 가지며, 그 기원은 세균과의 내공생으로 설명된다. 현재의 미토콘드리아는 핵 유전자에서 만들어져 수입되는 단백질에도 의존한다.
물, 이온, 단백질과 지질
세포 안의 반응은 물이 풍부한 환경에서 일어난다. 물 분자는 전체로는 전기적으로 중성이지만 분자 안의 전하 분포가 고르지 않은 극성 분자다. 이 특성 때문에 이온과 여러 극성 물질을 둘러싸고 용해시키며, 다른 분자와 수소 결합을 형성한다. 물과 분자 사이의 상호작용은 물질의 용해뿐 아니라 단백질의 접힘과 지질막의 형성에도 관여한다.
나트륨·칼륨·칼슘·염화 이온은 녹아 있다는 점에서는 작고 단순한 성분이지만, 그 농도와 전하 분포가 막전위와 신호 전달에 관여한다. 이온을 표기할 때 Na⁺, K⁺, Ca²⁺, Cl⁻의 위첨자는 전하를 뜻한다. Ca²⁺는 칼슘 이온 하나가 양전하 두 단위를 띤다는 표기다. 세포 내 칼슘에는 세포질에 자유롭게 존재하는 것, 단백질에 결합한 것, 소기관에 저장된 것이 있으며 이들의 분포와 농도는 각기 다르다.
산도는 효소와 단백질의 작동 조건에도 영향을 준다. pH는 수소 이온 활동도를 로그로 나타낸 값이다. 묽은 용액에서 농도로 근사하면 pH 6과 pH 7은 수소 이온 농도가 약 열 배 차이 난다. 세포는 완충 작용과 수송을 통해 구획별 조건을 조절한다. 리소좀 내부를 산성으로 유지하는 과정에도 막과 에너지를 쓰는 수송 장치가 참여한다.
단백질은 아미노산이 펩타이드 결합으로 이어진 사슬을 바탕으로 한다. 아미노산의 배열, 사슬의 접힘, 다른 사슬과의 결합, 화학적 변형이 기능에 영향을 준다. 같은 “단백질”이라는 말 안에 반응을 촉진하는 효소, 이온을 통과시키는 통로, 힘을 전달하는 구조, 특정 분자를 인식하는 수용체가 함께 들어간다. 단백질의 양이 같아도 활성 상태와 위치가 다르면 세포의 반응이 달라질 수 있다.
효소는 반응이 일어나는 속도를 바꾸는 촉매다. 반응물이 효소에 결합하고 반응을 거쳐 생성물이 떨어져 나오는 과정이 반복된다. 반응물과 생성물의 농도, 보조인자, 온도와 산도, 다른 분자에 의한 조절이 실제 속도에 관여한다. 단백질의 입체구조가 크게 흐트러지는 변성은 이런 결합과 반응을 바꿀 수 있다.
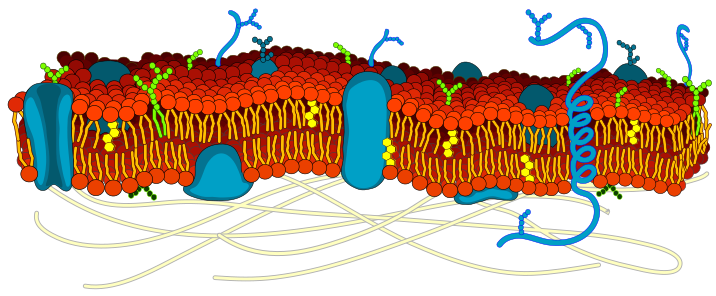
지질에는 저장 지방인 중성지방, 막의 주요 성분인 인지질, 콜레스테롤 등이 포함된다. 인지질은 물과 상호작용하는 부분과 물에 잘 섞이지 않는 부분을 함께 가져 물속에서 이중층을 이룰 수 있다. 막의 안팎 표면은 수용액과 접하고, 가운데에는 소수성 부분이 모인다. 이 구조 때문에 이온이나 많은 극성 분자가 막을 그대로 지나가기 어렵다. 막단백질은 이 물리적 경계에 선택적인 통로와 수송 경로를 제공한다.
탄수화물은 에너지 대사의 기질과 저장 물질로 쓰이고, 단백질이나 지질에 결합해 세포 표면의 인식에도 관여한다. 핵산인 DNA와 RNA는 뉴클레오타이드가 이어진 분자이며 유전정보의 보존·발현에 관여한다. 이들 분자는 세포 안에서 여러 조합으로 구조를 이룬다. 세포막에는 지질·단백질·당 성분이 함께 있고, 리보솜에는 RNA와 단백질이 함께 있다.
세포 안의 구획과 연결
형광 영상에 드러난 세 가지 구조
구조별 본문 찾아보기
Erin Rod · 2019 · 출처 · CC BY 4.0 · 원본 비율·색상 유지, 이미지 내용 변경 없음.
진핵세포에서 세포질(cytoplasm)은 대체로 세포막 안쪽에서 핵을 제외한 부분을 가리킨다. 세포질액(cytosol)은 그중 소기관 내부와 구별되는 액상 부분이다. 세포질액에는 이온, 대사물질, 효소와 여러 단백질이 존재하며 많은 반응이 이곳에서 진행된다. 세포질은 이 액상 부분에 미토콘드리아·소포체 등의 소기관과 세포골격을 아울러 이르는 말이다.
핵은 핵막으로 둘러싸인 구획이며, 사람 세포의 유전물질 대부분이 DNA와 단백질의 복합체인 염색질로 존재한다. 핵공을 통해 RNA와 단백질 등이 선택적으로 이동한다. 핵 안의 인(nucleolus; 핵소체)은 리보솜 RNA의 합성과 리보솜 소단위체 조립에 관여하는 영역으로, 별도의 막에 싸여 있지 않다. 핵, 염색체, DNA, 유전자는 서로 다른 크기와 조직 수준을 가리킨다. 핵이 DNA를 포함하고, 염색체가 긴 DNA와 결합 단백질로 이루어지며, 유전자는 그 DNA의 특정 기능 단위다.
리보솜(ribosome)은 mRNA의 정보를 따라 아미노산을 연결한다. 세포질에 자유롭게 있는 리보솜과 거친면소포체의 세포질 쪽 표면에 결합한 리보솜은 번역하는 단백질의 이동 경로에 따라 구분된다. 소포체 내부로 들어가거나 그 막에 삽입되는 단백질에는 해당 경로로 유도하는 신호가 관여한다. 세포질에 남는 단백질이나 핵·미토콘드리아로 수입되는 단백질은 다른 이동 경로를 따른다.
소포체(endoplasmic reticulum; ER)는 서로 이어진 막성 구획이다. 거친면소포체(rough ER; 조면소포체)는 표면의 리보솜 때문에 거칠게 보이며 분비 단백질과 여러 막단백질의 합성·접힘에 관여한다. 매끈면소포체(smooth ER; 활면소포체)에는 표면 리보솜이 두드러지지 않으며 지질 대사와 칼슘 저장 등의 기능이 있다. 두 영역은 서로 이어진 소포체 안에서 형태와 기능을 달리한다.
골지체(Golgi apparatus)에서는 소포체에서 온 화물의 변형과 분류가 이루어진다. 소포체에서 나온 수송 소포가 골지체 쪽으로 이동하고, 이후 목적지에 맞는 경로로 분배된다. 분비될 단백질, 세포막에 놓일 단백질, 리소좀으로 향할 단백질은 목적지가 다르다. 리소좀(lysosome)에서는 산성 환경에 적합한 효소가 여러 고분자를 분해한다. 세포 밖에서 들여온 물질과 세포 내부에서 회수한 성분이 이 분해 경로에 들어올 수 있다.
미토콘드리아(mitochondrion, 복수 mitochondria)에는 외막과 주름진 내막이 있고, 그 안의 바탕질을 기질(matrix)이라 한다. 내막의 전자전달계와 ATP 합성효소는 에너지 대사의 핵심 경로를 이룬다. 퍼옥시좀(peroxisome; 과산화소체)은 별도의 막성 소기관으로 특정 지방산의 산화와 과산화수소 처리 등에 관여한다. 리소좀의 고분자 분해와 퍼옥시좀의 산화 반응에는 각기 다른 효소와 반응 조건이 관여한다.
세포골격은 액틴 필라멘트, 중간필라멘트, 미세소관 등의 단백질 구조로 이루어진다. 형태를 지지하고 힘을 전달하며 세포 내부의 이동과 분열에 참여한다. 액틴은 세포 표면의 변형과 수축에, 중간필라멘트는 기계적 안정성에, 미세소관은 세포 내 수송과 방추체 형성 등에 관여한다. 이 기능들은 서로 겹치고 조절된다. 소포체에서 출발한 수송 소포의 이동에도 운동 단백질과 세포골격이 함께 관여한다.
막을 건너는 물질과 ATP
수동수송과 능동수송
| 경로 | 이동의 구동력 | 대표 사례 |
|---|---|---|
| 단순확산 | 물질의 기울기를 따름 | 지질층을 통한 산소 이동 |
| 촉진확산 | 물질의 전기화학적 기울기를 따름 | 통로를 통한 이온 이동 |
| 일차 능동수송 | ATP 가수분해 등과 직접 결합 | Na⁺/K⁺-ATPase |
| 이차 능동수송 | 다른 물질의 기울기와 결합 | Na⁺와 포도당의 공동수송 |
확산은 분자의 열운동으로 분포가 퍼지는 과정이다. 농도 차이가 있으면 순이동은 대체로 높은 쪽에서 낮은 쪽으로 나타나지만 개별 분자는 양방향으로 움직인다. 농도가 같아진 뒤에도 분자는 계속 움직이며, 양방향 이동량이 같으면 순이동은 0이 된다. 세포막에서는 여기에 투과성이 더해진다. 산소와 이산화탄소처럼 지질층을 비교적 잘 지나는 분자와 통로·운반체가 필요한 물질은 같은 경로를 이용하지 않는다.
통로나 운반체를 이용하면서 해당 물질의 구동력을 따라 이동하는 것을 촉진확산(facilitated diffusion)이라 한다. 이 과정은 막단백질을 이용하는 수동수송에 속한다. 이온의 이동 방향은 농도 차이와 전위 차이를 함께 반영한 전기화학적 기울기에 좌우된다. 안쪽 농도가 낮더라도 전기적 힘이 반대 방향으로 충분히 크면 순이동 방향이 달라질 수 있다.
삼투(osmosis)는 선택적 투과성을 가진 막을 사이에 둔 물의 이동과 관계된다. 세포막을 잘 통과하지 못하는 용질이 바깥에 상대적으로 많아지면 물이 빠져나가 세포가 줄어들 수 있다. 반대 조건에서는 물이 들어와 부풀 수 있다. 이때 세포 부피의 변화에는 용질의 막 투과성과 관찰 시간도 영향을 준다. 수분자의 이동에는 아쿠아포린 같은 물 통로도 관여한다.
능동수송은 물질을 자신의 전기화학적 기울기에 거슬러 이동시키는 과정이다. 일차 능동수송은 ATP 가수분해처럼 에너지를 공급하는 반응과 직접 결합한다. 대표적인 Na⁺/K⁺-ATPase는 한 작동 주기에서 ATP 하나의 가수분해와 연결해 Na⁺ 세 개를 바깥으로, K⁺ 두 개를 안으로 옮긴다. 이차 능동수송은 이미 형성된 다른 물질의 기울기를 이용한다. 예를 들어 나트륨이 기울기를 따라 들어오는 과정과 포도당의 유입을 결합할 수 있다.
큰 입자나 여러 분자를 막으로 감싸 들이는 세포내섭취(endocytosis), 소포의 막이 세포막과 융합해 내용물을 내보내는 세포외배출(exocytosis)도 있다. 이들 과정에서는 막이 굽거나 서로 융합하면서 화물을 담은 공간의 연결 상태가 바뀐다. 분비 소포의 내부에 있던 내용물은 융합 뒤 세포 밖으로 이어지고, 소포막의 일부는 세포막에 합쳐진다.
ATP(adenosine triphosphate; 아데노신 삼인산)는 여러 반응을 결합하는 데 쓰이는 분자다. ATP와 물이 반응해 ADP와 무기인산이 생기는 전체 가수분해 반응은 세포 조건에서 자유에너지를 방출할 수 있다. 이 자유에너지 변화에는 결합의 절단과 형성, 반응물과 생성물의 안정성이 함께 관계된다. 효소는 ATP 반응을 인산기 전달이나 단백질의 형태 변화 등과 연결한다.
세포질의 해당과정에서도 ATP가 만들어진다. 미토콘드리아에서는 영양소의 산화에서 얻은 전자가 전달계를 거치며 내막을 사이에 수소 이온의 전기화학적 기울기를 형성한다. ATP 합성효소를 통한 이온의 이동이 ADP와 무기인산으로 ATP를 합성하는 과정에 결합된다. 산소는 이 전달계의 마지막에서 전자를 받는다. 이 경로를 산화적 인산화라 한다. 세포가 얻는 ATP 양은 이용하는 대사 경로와 기질, 산소 공급 등의 조건에 따라 달라진다.
DNA에서 RNA, 단백질로
분비 단백질의 정보를 따라가는 경로
- 전사·RNA 가공핵
DNA를 주형으로 RNA 합성
- RNA의 수송핵공을 지나
mRNA가 세포질로 이동
- 단백질 합성·접힘리보솜·거친면소포체
번역과 소포체 진입
- 분비 경로골지체·분비 소포
단백질 변형과 분류·이동
- 세포외배출세포막
소포 융합으로 내용물 배출
DNA(deoxyribonucleic acid; 디옥시리보핵산)의 뉴클레오타이드는 당·인산·염기로 구성된다. 염기의 순서가 유전정보를 이룬다. 이중가닥에서는 보통 A와 T, G와 C가 상보적으로 짝을 이루며, 두 가닥의 방향은 서로 반대다. 세포분열에 앞선 복제에서는 기존 가닥이 새로운 가닥을 만드는 주형이 된다. 복제에서는 DNA가, 전사에서는 RNA가 새로 합성된다.
전사(transcription)는 DNA를 주형으로 RNA를 합성하는 과정이다. 단백질을 암호화하는 유전자에서는 만들어진 RNA가 가공을 거쳐 전령RNA(messenger RNA; mRNA)로 기능한다. 사람의 많은 유전자에서 초기 전사물에는 인트론과 엑손이 포함되며, 스플라이싱으로 인트론이 제거되고 엑손이 이어진다. 엑손의 조합이 달라지는 선택적 스플라이싱은 하나의 유전자에서 서로 다른 전사물이 나오는 경로 중 하나다.
번역(translation)에서는 리보솜이 mRNA를 읽고 아미노산 사슬을 만든다. mRNA의 연속된 세 염기가 코돈을 이루며, 운반RNA(transfer RNA; tRNA)는 코돈과 대응하는 안티코돈 및 아미노산을 통해 이 과정에 참여한다. 시작 위치가 정해져야 세 염기씩 읽는 틀도 정해진다. 같은 염기서열도 읽기틀이 달라지면 코돈의 조합과 생성물이 달라질 수 있다.
진핵세포의 핵 유전자에서 전사는 핵 안에서, 그 mRNA의 번역은 핵 밖의 리보솜에서 이루어진다. 이 공간적 구분에는 RNA의 가공과 핵공을 통한 이동이 끼어 있다. 미토콘드리아 유전자의 발현은 그 소기관 내부의 별도 장치를 이용한다. 핵에서 가공된 mRNA가 핵공을 지나 세포질로 이동하면, 리보솜은 그 염기서열에 따라 아미노산을 잇는다. 주형인 DNA는 핵에 남아 있다.
RNA에는 단백질 합성의 주형이 되는 mRNA 외에도 여러 종류가 있다. 리보솜RNA(ribosomal RNA; rRNA)는 리보솜의 구성과 촉매 기능에 관여하고, tRNA는 아미노산을 운반하며, 여러 비암호화 RNA는 유전자 발현을 조절한다. DNA에도 단백질의 아미노산 배열을 직접 암호화하지 않는 영역이 많다. 조절 서열, 비암호화 RNA 유전자, 염색체 구조에 관여하는 영역을 단백질 암호화 부위와 구별할 수 있다. 각 영역의 기능이 모두 밝혀진 것은 아니다.
세포 안의 단백질 양은 유전자 발현의 여러 단계에서 조절된다. 전사인자가 조절 부위에 결합하는 정도, RNA의 가공과 분해, 번역 속도, 단백질의 이동과 분해가 함께 작용한다. RNA의 양이 변한 뒤 단백질의 양과 활성이 변하기까지는 시간차가 생길 수 있으며, 변화의 정도도 각 단계의 조절에 따라 달라진다. RNA량, 단백질량, 단백질의 활성은 실험에서 각각 측정할 수 있는 항목이다.
분화된 세포들은 대체로 같은 유전체를 공유하면서 발현 양상을 달리한다. 신경세포와 근육세포에서는 접근 가능한 조절 영역과 전사인자, 주고받는 신호가 다르고, 그 차이가 만들어지는 단백질과 형태에 연결된다. 같은 세포에서도 자극 전후에 발현 양상이 바뀐다.
분열, 분화와 세포의 소실
세포주기에 따른 염색체 수와 DNA 양
| 전형적인 사람 이배체 세포 | 염색체 수 | DNA 양 |
|---|---|---|
| G₁기 세포 하나 | 46개 | 2C |
| S기 완료 후 G₂기 세포 하나 | 46개, 각각 두 자매염색분체 | 4C |
| 분열 완료 뒤 딸세포 하나 | 46개 | 2C |
세포주기(cell cycle)는 한 세포가 성장하고 유전물질을 복제한 뒤 분열하는 일련의 과정이다. 진핵세포의 전형적인 주기를 G₁기, S기, G₂기, M기로 나눈다. S기에는 DNA가 복제되고, M기에는 염색체를 나누는 유사분열과 세포질을 나누는 과정이 진행된다. 간기(interphase)는 G₁·S·G₂기를 묶은 말이다. 간기에도 세포의 성장과 대사가 이어지며, S기에는 DNA 복제가 이루어진다.
S기에는 DNA 양이 늘지만 염색체 수를 세는 기준은 별도다. 사람의 전형적인 이배체 세포를 예로 들면, G₁기의 46개 염색체는 복제 뒤 각각 두 자매염색분체로 이루어진다. G₂기에는 염색체 수가 46개로 유지된 채 DNA 양이 G₁기의 두 배가 된다. 유사분열에서 자매염색분체가 분리된 뒤에는 각각을 염색체로 센다. 유사분열과 세포질분열을 마치면 딸세포 각각에 46개의 염색체가 분배된다.
유사분열에서는 염색체가 응축되고 방추체와 연결되어 배열된 뒤 양쪽으로 분리된다. 동물세포의 세포질분열에는 액틴과 미오신이 관여하는 수축 구조가 작동한다. 핵분열과 세포질분열은 각각 유전물질의 분배와 세포질의 분리를 맡는다. 두 과정의 진행이 달라지거나 세포가 융합하면 핵의 수와 세포 수가 일대일로 맞지 않을 수 있다. 여러 핵을 가진 세포가 포함된 시료에서는 핵의 수가 세포 수보다 많게 나타난다.
세포주기를 반복하는 정도는 세포의 종류와 상태에 따라 다르다. 주기에서 벗어난 G₀ 상태에는 다시 증식에 들어갈 수 있는 상태와 장기간 분열하지 않는 상태가 포함된다. 성숙한 신경세포처럼 분열 능력이 매우 제한된 세포도 대사와 신호 기능을 수행한다. 세포주기의 진행에는 DNA 손상, 복제 상태, 염색체 연결 등을 감시하는 조절이 작용한다. 손상에 대한 반응으로 주기 진행이 멎어도 세포의 생존과 대사가 이어지는 경우가 있다.
감수분열(meiosis)은 생식세포 형성과 관련되며 한 차례의 DNA 복제 뒤 두 차례의 분열로 염색체 세트 수를 줄인다. 사람에서는 보통 이배체 46개에서 반수체 23개로 이어지고, 수정으로 두 세트가 합쳐진다. 상동염색체 사이의 재조합과 분리 방식은 유전적 다양성에 기여한다. 체세포가 늘어나는 일반적인 유사분열과 생식세포 형성의 감수분열은 목적과 염색체의 움직임이 다르다.
증식(proliferation)은 세포가 분열해 늘어나는 과정이고, 분화(differentiation)는 특수한 형태와 기능을 갖추는 과정이다. 증식의 정도는 세포 수와 분열 지표로, 분화의 양상은 형태·단백질 발현·기능 등의 변화로 살필 수 있다. 줄기세포를 설명할 때에는 자기재생과 분화 능력이 함께 들어간다. 특정 단백질 표지가 검출됐다는 사실, 여러 차례 증식했다는 사실, 실제로 특정 계열로 분화했다는 실험은 각각 다른 측면을 뒷받침한다.
아폽토시스(apoptosis; 세포자멸사)는 조절된 세포 죽음의 한 형태로 발생과 조직 유지에도 관여한다. 세포의 구성 요소가 분해되고 주변 세포에 의해 제거되는 과정이 포함된다. 분열 정지나 분화를 거친 세포에서도 생명 활동은 이어질 수 있으며, 세포 죽음에는 아폽토시스 외에도 여러 기전이 있다. 배양 뒤 회수되는 세포 수에는 증식과 죽음, 접시에서 떨어져 회수되지 않은 세포 등이 함께 영향을 준다.
세포 수의 변화에는 생성과 소실이 함께 반영된다. 가령 처음 100개였던 세포가 다음 측정에서 150개가 됐다면 순증가는 50개다. 이 가상의 계산에는 새로 생긴 수와 사라진 수의 차이가 담겨 있다. 생성과 소실이 같은 만큼 일어나면 전체 수는 그대로일 수도 있다. 증식 실험에서는 시점별 세포 수 외에 DNA 합성, 분열, 생존 등의 지표를 측정해 그 사이의 변화를 살핀다.
이웃 세포, 기질과 조직
다세포 생물에서 세포가 놓이는 바깥은 다른 세포와 세포외기질, 체액으로 이루어진 환경이다. 세포외기질(extracellular matrix; ECM)에는 콜라겐을 비롯한 단백질과 당 성분이 포함되며 조직마다 조성과 배열이 다르다. 그물처럼 얽힌 섬유와 물을 머금는 성분은 조직의 기계적 성질에도 관여한다. 세포가 기질을 만들고 바꾸며, 기질에 붙은 세포가 다시 그 환경의 영향을 받는다.
인테그린(integrin)은 세포가 기질과 연결되는 데 관여하는 막단백질이다. 바깥쪽 결합과 안쪽 세포골격·신호 장치가 이어져, 접착 상태와 힘이 세포의 반응에 영향을 준다. 배양 접시에서 같은 세포를 다른 표면이나 기질 위에 놓았을 때 형태와 행동이 달라질 수 있는 것도 이 관계와 연결된다. 배지의 조성과 배양 표면은 세포의 상태에 영향을 주는 실험 조건에 해당한다.
이웃 세포 사이에는 기능과 구성 단백질이 다른 여러 연결 구조가 있다. 밀착연접(tight junction)은 상피세포 사이의 통과 경로를 조절하고, 부착 구조는 세포들이 힘을 견디도록 연결한다. 데스모솜(desmosome)은 중간필라멘트와 이어지는 부착 구조다. 간극연접(gap junction)은 인접 세포 사이에 이온과 작은 분자가 이동할 수 있는 통로를 이룬다.
세포의 신호는 수용체에 결합하는 분자와 그 뒤에 이어지는 반응으로 설명할 수 있다. 수용체는 세포 표면에도, 세포 내부에도 있다. 같은 신호 분자가 도달해도 어떤 수용체와 신호 전달 장치를 가진 세포인지에 따라 반응이 달라진다. 가까운 이웃에게 작용하는 신호와 혈류를 통해 멀리 도달하는 호르몬 신호는 전달 범위가 다르다. 신호에 따른 반응은 대사 변화, 분비, 분열, 분화 등으로 나타나며 수용체와 세포 내부의 전달 경로에 따라 달라진다.
신호 뒤에는 단백질의 인산화나 이온 농도 변화처럼 빠른 반응도 있고, 유전자 발현과 단백질 합성처럼 더 긴 과정을 거치는 반응도 있다. 반응이 시작되는 기전과 종료되는 기전도 함께 존재한다. 전달 물질이 제거되거나, 수용체 상태가 바뀌거나, 전달 과정의 화학적 변형이 되돌려지면 신호의 지속 시간이 달라진다. 한 차례의 자극과 지속적인 자극은 신호의 유지 시간과 세포의 반응 양상을 달리할 수 있다.
조직은 세포 종류의 목록에 공간적 배열과 기질이 더해진 구조다. 상피에서는 세포가 서로 연결되어 면을 이루고, 결합조직에서는 다양한 세포와 기질의 조합이 나타난다. 혈액도 액체 성분 속에 세포 등이 존재하는 조직으로 다루며, 뼈에는 광물화된 기질과 그 안팎의 세포가 있다.
세포 수준의 발견이 조직의 기능으로 이어지는 과정에는 위치가 들어간다. 배양에서 얻은 세포의 분비 특성과 몸속에서의 작용 사이에는 세포의 생존, 물질의 이동, 주변 조직과의 연결이 관여한다. 이식 뒤 세포의 생존, 분비 물질의 분포, 주변 조직의 반응을 측정하면 이 연결을 추적할 수 있다. 와튼젤리처럼 세포와 기질이 함께 문제 되는 자료에서도 배양 세포, 원래의 조직, 최종 제제의 구성은 각각 확인된다.
현미경과 실험이 보여 주는 것
배양 세포의 형광 영상
현미경의 배율은 상이 얼마나 확대되는지를, 분해능은 가까이 있는 두 구조를 얼마나 구별할 수 있는지를 말한다. 화면에서 사진을 늘리면 표시 크기가 커지며, 원본에 기록된 두 구조의 분리 정도는 그대로 유지된다. 광학계의 성능, 빛의 파장, 시료 처리와 관찰 방식이 분해능과 대비에 영향을 준다. 관찰 목적에 따라 세포 전체의 움직임을 보거나, 특정 구조의 위치를 표시하거나, 매우 작은 내부 구조를 살피는 방법을 택한다.
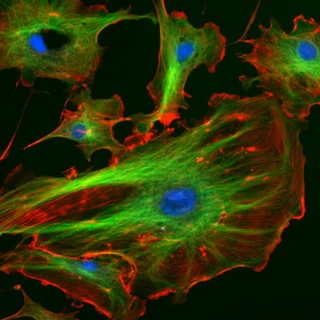
일반적인 광학현미경에서는 살아 있는 세포나 염색한 절편을 관찰할 수 있다. 투명한 세포에서는 위상차 등으로 대비를 얻기도 한다. 형광현미경은 특정 파장의 빛으로 형광 물질을 들뜨게 하고 방출되는 빛을 검출한다. 항체에 연결한 형광 표지, 특정 성분에 결합하는 염료, 단백질에 붙인 형광 단백질 등 표지 방법에 따라 무엇을 보고 있는지가 달라진다. 화면의 파랑·초록·빨강은 표시 채널에 부여한 색일 수 있다.
공초점현미경은 초점면 밖에서 오는 빛을 줄여 광학적 단면을 얻는다. 서로 다른 높이의 단면을 모으면 세포의 입체적 분포를 재구성할 수 있다. 이때 한 장의 단면, 여러 단면을 겹친 투영 영상, 표면을 계산한 입체 모형은 같은 자료의 서로 다른 표현이다. 투영 영상에서 두 구조가 겹쳐 보여도 높이가 다를 수 있다. 공위치 분석의 결과에는 영상 처리 방법과 축 방향의 해상도도 영향을 준다.
전자현미경은 전자를 이용해 세포의 미세구조를 관찰한다. 투과전자현미경은 얇은 시료를 통과한 전자를 이용하고, 주사전자현미경은 표면을 주사하며 생긴 신호 등을 검출한다. 일반적인 생물 시료의 준비에는 고정, 탈수, 절편 제작 또는 코팅 등이 포함될 수 있으며 방식에 따라 과정이 달라진다. 이러한 전처리는 시료의 상태와 영상에 나타나는 구조에 영향을 준다. 고정한 절편의 미세구조와 살아 있는 세포의 연속 영상은 서로 다른 관찰 조건에서 얻어진다.
Allen Cell Explorer에서는 배양한 사람 유도만능줄기세포의 실제 형광 영상을 탐색할 수 있다. 핵 DNA, 세포 경계, 표지한 세포 구조가 각각의 채널로 제공된다. 영상에서 세포나 핵의 경계를 계산해 나눈 분할 자료(segmentation)는 원래 검출된 형광 강도와 다른 자료층이다. 예측 모델로 만든 세포 구조도 실제 관찰 영상과 별도로 제공된다.
앞의 형광 사진은 소 폐동맥 내피세포의 핵·액틴·미토콘드리아를 보여 준다. 소포체와 골지체는 이 사진의 표지 대상에 포함되지 않는다. 축척 막대와 배율 정보도 없어 화면에서 잰 길이를 실제 세포의 크기로 환산할 수 없다. Allen의 외부 뷰어에서는 배양한 사람 유도만능줄기세포의 영상을 제공한다. 소의 내피세포와 사람의 유도만능줄기세포는 세포 유형부터 다르고, 표지한 구조와 촬영 조건에 따라서도 화면에 드러나는 모습이 달라진다.
세포배양은 몸에서 분리한 세포를 배지와 조절된 환경에서 유지하거나 늘리는 방법이다. 배지 조성, 표면, 온도와 기체 조건, 계대 횟수는 세포의 상태에 영향을 줄 수 있다. 배양 환경에서는 원래 조직의 세포 배열과 기질, 다른 세포와 주고받던 신호가 달라진다. 실험 목적에 따라 단일 세포 유형의 반응을 보기 좋은 조건도 있고, 여러 세포와 기질을 함께 구성하는 조건도 있다.
분자 수준의 측정은 현미경의 모양과 다른 정보를 더한다. RNA를 측정하면 유전자 발현의 한 단계를, 단백질을 측정하면 산물의 양이나 위치를, 기능 실험을 하면 특정 조건에서 수행한 작용을 볼 수 있다. 단백질의 존재와 그 단백질이 관여하는 반응은 각각 측정할 수 있다. 예를 들어 수용체의 존재, 자극 뒤 신호 변화, 실제 분비량 변화는 같은 과정의 서로 다른 지점이다.
분비 단백질의 생성과 이동은 이들 관찰을 함께 적용할 수 있는 사례다. 핵 안에서의 전사와 mRNA의 이동, 소포체에서의 합성·접힘, 골지체를 거친 수송은 서로 이어진 과정이다. 각 구조의 영상과 RNA·단백질의 측정값, 세포 밖으로 나온 분비량은 그 과정의 서로 다른 지점을 보여 준다.
다시 짚어 보기
핵이 보이지 않는 단면만으로 무핵세포라고 할 수 있을까?
절편이 핵을 지나지 않았을 수 있다. 다른 단면·초점면에서 핵이 나타나기도 한다. 성숙 적혈구처럼 실제로 핵을 잃은 세포도 있다.
해당 절로 돌아가기 ↑이온 통로를 통과했으면 능동수송일까?
통로를 통한 이동은 해당 이온의 전기화학적 기울기를 따른다. 단백질의 관여 여부와 능동수송 여부는 다른 기준이다.
해당 절로 돌아가기 ↑DNA를 복제한 G₂기 세포는 염색체가 92개일까?
전형적인 사람 이배체 세포에서는 46개다. 각 염색체가 두 자매염색분체로 구성되며 DNA 양이 두 배가 된다.
해당 절로 돌아가기 ↑RNA가 늘었다면 단백질 기능도 그만큼 증가했을까?
RNA의 가공·분해와 번역, 단백질의 변형·이동·분해가 사이에 있다. 단백질의 양과 실제 작용은 별도 측정 대상이다.
해당 절로 돌아가기 ↑소포체에서 만들어지는 단백질은 모두 세포 밖으로 나갈까?
분비 경로에는 막에 삽입되거나 소기관에 머무는 단백질도 포함된다. 화물의 목적지와 분류 경로가 다르다.
해당 절로 돌아가기 ↑이어서 읽기
자료와 사료
기본 구조·기전은 공개 교재와 기관 자료로 대조했다. 훅의 코르크 관찰은 원저 전사본, 19세기 세포설은 현대 과학사 해설을 사용했다. 훅의 원전 도판과 형광 사진은 각 그림에 원출처·제작자·이용 조건을 표시했다. 비교 표와 분비 경로는 본문의 근거를 바탕으로 편집했다.
자료 확인·초판 발행 2026.09.30.
- What is a cell?
U.S. National Library of Medicine. MedlinePlus Genetics. What is a cell?.
인용 절 1 · 4 · 6 - 4.1 Studying Cells
Clark MA, Douglas M, Choi J. Biology 2e. OpenStax; 2018. 4.1 Studying Cells.
인용 절 2 · 11 - 4.2 Prokaryotic Cells
Clark MA, Douglas M, Choi J. Biology 2e. OpenStax; 2018. 4.2 Prokaryotic Cells.
인용 절 1 · 2 · 4 - 4.3 Eukaryotic Cells
Clark MA, Douglas M, Choi J. Biology 2e. OpenStax; 2018. 4.3 Eukaryotic Cells.
인용 절 1 · 4 · 6 - 4.4 The Endomembrane System and Proteins
Clark MA, Douglas M, Choi J. Biology 2e. OpenStax; 2018. 4.4 The Endomembrane System and Proteins.
인용 절 6 - 4.5 The Cytoskeleton
Clark MA, Douglas M, Choi J. Biology 2e. OpenStax; 2018. 4.5 The Cytoskeleton.
인용 절 2 · 6 - 4.6 Connections between Cells and Cellular Activities
Clark MA, Douglas M, Choi J. Biology 2e. OpenStax; 2018. 4.6 Connections between Cells and Cellular Activities.
인용 절 10 - 2.2 Water
Clark MA, Douglas M, Choi J. Biology 2e. OpenStax; 2018. 2.2 Water.
인용 절 5 - 3.3 Lipids
Clark MA, Douglas M, Choi J. Biology 2e. OpenStax; 2018. 3.3 Lipids.
인용 절 5 - 3.4 Proteins
Clark MA, Douglas M, Choi J. Biology 2e. OpenStax; 2018. 3.4 Proteins.
인용 절 5 - 5.2 Passive Transport
Clark MA, Douglas M, Choi J. Biology 2e. OpenStax; 2018. 5.2 Passive Transport.
인용 절 7 - 5.3 Active Transport
Clark MA, Douglas M, Choi J. Biology 2e. OpenStax; 2018. 5.3 Active Transport.
인용 절 7 - 6.4 ATP: Adenosine Triphosphate
Clark MA, Douglas M, Choi J. Biology 2e. OpenStax; 2018. 6.4 ATP: Adenosine Triphosphate.
인용 절 7 - 7.4 Oxidative Phosphorylation
Clark MA, Douglas M, Choi J. Biology 2e. OpenStax; 2018. 7.4 Oxidative Phosphorylation.
인용 절 7 - What is DNA?
U.S. National Library of Medicine. MedlinePlus Genetics. What is DNA?.
인용 절 5 · 8 - How do genes direct the production of proteins?
U.S. National Library of Medicine. MedlinePlus Genetics. How do genes direct the production of proteins?.
인용 절 8 · 11 - Can genes be turned on and off in cells?
U.S. National Library of Medicine. MedlinePlus Genetics. Can genes be turned on and off in cells?.
인용 절 8 · 10 - What is noncoding DNA?
U.S. National Library of Medicine. MedlinePlus Genetics. What is noncoding DNA?.
인용 절 8 - How do cells divide?
U.S. National Library of Medicine. MedlinePlus Genetics. How do cells divide?.
인용 절 9 - 10.2 The Cell Cycle
Clark MA, Douglas M, Choi J. Biology 2e. OpenStax; 2018. 10.2 The Cell Cycle.
인용 절 9 - 9.3 Response to the Signal
Clark MA, Douglas M, Choi J. Biology 2e. OpenStax; 2018. 9.3 Response to the Signal.
인용 절 10 - 3.6 Cellular Differentiation
Betts JG, et al. Anatomy and Physiology 2e. OpenStax; 2022. 3.6 Cellular Differentiation.
인용 절 9 - Micrographia, Observation XVIII
Hooke R. Micrographia. London; 1665. Observation XVIII, Of the Schematisme or Texture of Cork. Project Gutenberg 전자 전사본.
인용 절 3 - 3.2 Foundations of Modern Cell Theory
Parker N, et al. Microbiology. OpenStax; 2016. 3.2 Foundations of Modern Cell Theory.
인용 절 3 - 실제 배양 세포의 형광 영상과 분할 자료
Allen Institute for Cell Science. Cell Feature Explorer; Quickstart Guide for Teachers.
인용 절 11 - Stem Cell Basics
National Institutes of Health. Stem Cell Basics. 세포의 자기재생·분화·배양 부분.
인용 절 9 · 10 · 11 - Apoptosis
National Cancer Institute. NCI Dictionary of Cancer Terms. Apoptosis.
인용 절 9 - 18.3 Erythrocytes
Betts JG, et al. Anatomy and Physiology 2e. OpenStax; 2022. 18.3 Erythrocytes.
인용 절 1 · 2 - 10.2 Skeletal Muscle
Betts JG, et al. Anatomy and Physiology 2e. OpenStax; 2022. 10.2 Skeletal Muscle.
인용 절 1