세포질 Cytoplasm
세포질은 핵 바깥에서 세포막 안쪽까지 이어지는 영역이다. 세포질액과 소기관, 세포골격이 함께 놓이며, 분자의 확산과 방향성 수송, 반응의 공간적 분리가 이 안에서 이루어진다.
세포질과 세포질액의 범위
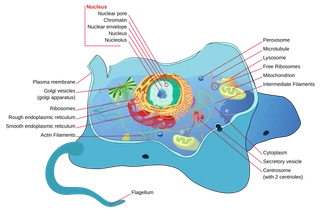
세포질(細胞質; cytoplasm)은 진핵세포에서 세포막 안쪽 가운데 핵을 제외한 부분이다. 세포질액, 미토콘드리아와 소포체 같은 세포소기관, 세포골격과 여러 입자성 구조가 이 범위에 들어간다. 사람의 세포를 설명할 때도 이 구분을 쓴다. 핵막 바깥에서 세포막 안쪽까지 이어지는 영역에는 물질을 만들고 옮기고 분해하는 서로 다른 구조가 함께 놓여 있다.
세포질액(cytosol)은 그중 막으로 둘러싸인 소기관의 내부와 구별되는 수용성 환경을 가리킨다. 물에 이온과 작은 대사물질이 녹아 있고, 효소와 RNA, 여러 단백질 복합체가 분포한다. 미토콘드리아의 기질과 소포체의 내강은 각각 별도 막 안의 공간이다. 두 소기관은 세포질에 포함되지만 그 안의 액체를 세포질액에 합쳐 부르지는 않는다.
같은 물질을 두고도 어느 면을 말하는지에 따라 위치 설명이 달라진다. 거친면소포체에 붙은 리보솜은 소포체 막의 세포질 쪽 표면에 놓이고, 그곳에서 합성되는 분비 단백질은 막을 가로질러 내강으로 들어갈 수 있다. “소포체에 있다”는 말에는 막 바깥 표면과 막 안의 공간이 모두 들어갈 수 있으므로, 반응의 위치를 설명할 때는 면과 구획을 함께 적는다.
핵 안의 핵질과 세포질액은 핵공을 통해 물질을 주고받는다. 핵공은 작은 분자가 오갈 경로를 제공하고, 큰 분자와 복합체의 이동에는 선택적인 수송 과정이 관여한다. 공간 사이에 통로가 있어도 핵 안팎에는 서로 다른 구조와 반응이 유지된다. 이 글에서 세포질은 핵 바깥의 영역, 세포질액은 소기관 내부와 구별되는 환경이라는 뜻으로 사용한다.
어느 공간을 가리키는 말인가
| 용어 | 포함하는 범위 | 위치의 예 |
|---|---|---|
| 세포질 | 세포막 안에서 핵을 제외한 영역 | 세포질액·미토콘드리아·소포체·세포골격 |
| 세포질액 | 막성 소기관 내부와 구별되는 수용성 환경 | 해당과정의 여러 효소와 대사물질이 분포 |
| 소기관 내강·기질 | 각 소기관 막 안의 구획 | 소포체 내강, 미토콘드리아 기질 |
| 핵질 | 핵막 안의 환경 | 핵공을 통해 세포질액과 물질 교환 |
물과 분자가 함께 만드는 환경
세포질액의 바탕은 물이다. 물은 이온과 극성 분자를 둘러싸며, 단백질 표면과도 끊임없이 상호작용한다. 단백질이 접혀 어떤 면을 물 쪽으로 드러내는지, 다른 분자와 얼마나 잘 결합하는지에는 이러한 상호작용이 관여한다. 세포질액의 성질은 물의 양과 그 안에 들어 있는 분자의 종류·농도를 함께 반영한다.
작은 성분에는 K⁺·Mg²⁺ 같은 이온, 아미노산, 당 대사의 중간산물, ATP 같은 뉴클레오타이드가 있다. 이들은 반응의 재료이거나 보조인자로 쓰이고, 단백질과 결합하기도 한다. 어떤 물질의 총량을 잰 값과 자유롭게 존재하는 부분을 잰 값은 서로 다를 수 있다. 단백질에 결합한 상태와 용액에 풀려 있는 상태를 오가는 동안 실제 반응에 참여하는 양도 달라진다.
단백질과 핵산은 자신이 차지하는 부피를 가지며 서로의 표면과 접촉한다. 큰 복합체가 많아지면 다른 입자가 들어갈 수 있는 공간과 이동 경로가 달라진다. 이런 영향을 고분자 혼잡(macromolecular crowding)이라는 말로 다룬다. 부피를 차지하는 효과에 분자 사이의 결합과 전하에 따른 상호작용이 겹쳐 실제 세포 내부의 움직임이 정해진다.
세포가 커지는 동안 고분자의 수가 같은 비율로 늘지 않으면 단위 부피당 농도는 달라진다. 반대로 물이 빠져나가 부피가 줄면 같은 수의 입자도 더 좁은 공간을 점유한다. 성분의 합성·분해와 세포 부피의 변화가 함께 일어나므로, 세포질의 혼잡도 역시 세포의 성장 상태와 환경에 따라 바뀔 수 있다.
분자가 퍼지는 속도를 재는 법
세포질액의 분자는 주변 분자들과 충돌하며 움직인다. 한 입자의 짧은 궤적은 방향을 계속 바꾸지만, 많은 입자가 처음 모였던 영역에서 퍼져 나가는 과정은 확산으로 기술할 수 있다. 농도가 균일해진 뒤에도 개별 입자의 운동은 계속된다. 실험에서는 시간에 따른 분포 변화나 입자의 위치 변화를 이용해 이동성을 측정한다.
형광 회복법(fluorescence recovery after photobleaching; FRAP)에서는 형광 표지가 있는 작은 영역에 강한 빛을 가해 표지의 형광을 잃게 한다. 이후 주변의 형광 분자가 그 영역으로 들어오면 신호가 다시 높아진다. 회복하는 속도와 회복되는 비율은 서로 다른 정보다. 관찰 시간 안에 충분히 교환되지 않는 분획이 있으면 신호가 처음 수준까지 돌아오지 않을 수 있다.
1986년 Luby-Phelps·Taylor·Lanni의 연구는 살아 있는 Swiss 3T3 세포에 크기를 나눈 형광 덱스트란을 넣고 그 움직임을 조사했다. 연구진은 크기가 큰 탐침의 이동이 더 제한되는 결과를 얻었다. 논문에서 제시한 유체상 점도와 구조물 사이 간격은 탐침의 회복 양상과 특정 구조 모형에서 추정한 값이었다. 그 수치에는 사용한 세포와 탐침, 해석의 가정이 함께 들어 있다.
탐침이 멈추거나 늦게 퍼지는 데에는 주변 구조를 돌아가는 경로와 특정 성분에 붙잡히는 과정이 모두 관여할 수 있다. 또 영상에서 위치를 읽는 시간 간격에 따라 짧은 멈춤과 긴 이동이 다르게 드러난다. 확산계수는 이 조건에서 측정한 이동을 요약하는 값이며, 세포질 안의 모든 분자에 하나의 값을 붙일 수 있는 것은 아니다.
리보솜의 양과 입자의 이동
세포질의 구성 성분을 바꾸면 그 안을 지나는 입자의 움직임도 달라질까. Delarue 등의 2018년 연구는 세포 안에서 일정한 크기로 조립되는 형광 나노입자를 만들고 이동을 추적했다. 이 입자를 GEM(genetically encoded multimeric nanoparticle)이라 불렀다. 연구에는 출아효모와 사람의 배양세포가 쓰였다.
연구진은 mTORC1 경로의 작동을 낮췄을 때 리보솜 농도와 입자 이동성이 함께 달라지는 결과를 보고했다. 효모에서는 직경 20 nm와 40 nm의 GEM을 비롯한 큰 입자의 유효 확산이 빨라졌고, 작은 GFP 탐침의 움직임에서는 같은 정도의 변화가 관찰되지 않았다. 동일한 세포 환경의 변화가 서로 다른 크기의 탐침에 다르게 나타난 것이다.
리보솜은 RNA와 단백질이 조립된 입자로서 번역을 수행하면서 세포질의 공간도 점유한다. 이 연구는 리보솜의 농도가 세포 내부의 물성에도 관여함을 보여 주었다. 여기서 농도는 리보솜의 개수와 그 입자가 놓인 부피를 함께 반영한다.
연구에서 얻은 관계는 해당 배양 조건과 탐침의 크기에서 확인한 결과다. 세포질의 반응을 비교할 때에는 성분의 기능뿐 아니라 입자의 수, 부피와 이동 규모도 함께 달라질 수 있다. 작은 분자의 확산과 큰 복합체의 이동을 각각 측정하는 이유가 여기에 있다.
세포골격과 방향을 가진 수송
세포골격(cytoskeleton)은 세포질 안에 뻗은 단백질 섬유들의 체계다. 액틴 필라멘트, 미세소관과 중간필라멘트는 구성 단백질과 배열이 다르며 서로 연결되어 힘을 전달한다. 세포의 형태가 변하거나 분열할 때 이들의 조립과 배치도 달라진다. 소기관의 위치와 세포 표면의 움직임에는 주변 세포골격과의 결합이 관여한다.
미세소관에는 구조적으로 구별되는 양끝이 있다. 관례적으로 플러스 끝과 마이너스 끝이라 부르며, 이는 전하의 부호를 뜻하지 않는다. 대표적인 키네신은 플러스 끝 쪽으로, 세포질 다이네인은 마이너스 끝 쪽으로 이동한다. 키네신 계열 전체에는 이동 방향과 기능이 다른 구성원도 있다.
운동 단백질은 ATP 가수분해와 구조 변화를 결합해 힘을 내고, 연결 단백질 등을 통해 결합한 소포나 소기관을 옮긴다. 액틴을 따라 이동하는 미오신 계열도 있다. 화물이 어디까지 이동하는지는 섬유의 방향, 운동 단백질의 종류, 결합과 해제, 목적지에서의 고정에 따라 달라진다. 확산에 의한 퍼짐에 이런 방향성 수송이 더해지면서 세포 안의 분포가 유지된다.
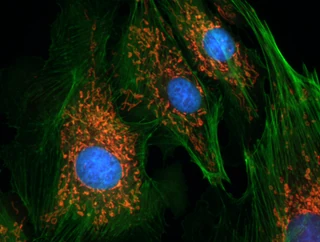
형광 영상은 표지한 구성 성분의 분포를 보여 준다. 아래 영상에서는 핵, 미세소관과 액틴 필라멘트를 서로 다른 색으로 표시했다. 핵 주변에 보이는 선들은 세포질 속 구조의 일부이며, 선들 사이에도 표지하지 않은 분자와 구조가 있다. 정지 영상은 그 위치를 보여 주고, 실제 이동 속도나 수송 방향은 시간에 따른 추적이 있어야 측정할 수 있다.
핵 주변으로 뻗은 세포골격
ImageJ 표본 영상 · Public domain · 이용 조건 · 표본·염색 설명
반응의 위치와 구획 사이의 연결
포도당을 분해하는 해당과정(glycolysis)은 세포질액에서 진행된다. 여러 효소가 포도당에서 유래한 중간산물을 차례로 바꾸며 피루브산을 만든다. 이 과정에서 ATP가 순생성되고 NAD⁺가 NADH로 환원된다. 한 반응에서 나온 물질이 다음 효소의 기질이 되면서 경로가 이어진다.
피루브산의 이후 경로에는 세포질액에서 젖산으로 전환되는 과정과 미토콘드리아로 들어가는 과정이 있다. 젖산 생성에는 NADH를 NAD⁺로 되돌리는 반응이 결합된다. 미토콘드리아로 들어간 피루브산은 기질에서 아세틸-CoA로 전환될 수 있다. 세포질액의 반응과 미토콘드리아의 반응을 연결하는 데에는 물질의 이동과 각 구획의 효소가 함께 필요하다.
단백질 합성의 위치도 이어질 경로와 관계된다. 세포질에 있는 리보솜은 mRNA를 읽으며 아미노산을 연결한다. 합성 중인 단백질에 소포체 경로로 향하는 신호가 있으면 리보솜과 그 사슬이 소포체 막으로 유도될 수 있다. 사슬은 내강으로 들어가거나 막에 삽입되며, 내강에서는 접힘과 일부 화학적 변형이 진행된다. 리보솜의 번역과 내강의 가공은 막의 서로 다른 쪽에서 연결된다.
분비 단백질이 소포체에서 골지체로 옮겨질 때에는 막으로 둘러싸인 운반 구획의 내부에 실린다. 세포질을 가로질러 이동하는 소포의 위치와 소포 안의 화물이 놓인 구획은 서로 다른 설명이다. 운반 중에도 화물은 막 안쪽에 머물 수 있고, 소포 표면의 단백질은 세포질 쪽의 수송·인식 장치와 접촉한다. 반응의 위치를 나누는 막과 구획을 잇는 이동 경로가 함께 작동한다.
세포질에서 이어지는 반응과 이동
| 과정 | 주요 위치 | 이어지는 경로 |
|---|---|---|
| 해당과정 | 세포질액 | 피루브산 생성, ATP 순생성·NADH 생성 |
| 피루브산의 산화적 전환 | 미토콘드리아 기질 | 수송 후 아세틸-CoA 생성 |
| 분비 단백질의 번역 | 소포체 막의 세포질 쪽 리보솜 | 합성 사슬의 내강 이동 |
| 분비 경로의 화물 운반 | 막으로 둘러싸인 운반 구획 | 내강의 화물이 소포체에서 골지체로 이동 |
막 없이 모이는 RNA와 단백질
세포질에는 RNA와 단백질이 국소적으로 모여 있는 과립도 있다. 그중에는 별도의 지질막 없이 주변과 성분을 교환하는 구조가 있다. 특정 분자들이 서로 결합하는 성질과 농도에 따라, 같은 세포질 안에서도 그 성분이 풍부한 영역과 상대적으로 적은 영역이 생길 수 있다.
2009년 Brangwynne 등의 연구는 예쁜꼬마선충(Caenorhabditis elegans) 배아의 P 과립을 관찰했다. P 과립은 RNA와 단백질을 포함하며 초기 배아에서 뒤쪽으로 편재한다. 연구진은 과립이 서로 합쳐지고 표면에 젖듯 접촉하며, 액체 방울과 비슷한 거동을 보인다고 보고했다.
과립의 위치 변화에는 용해와 응축이 관여했다. 한쪽에서 구성 성분이 주변으로 풀리고 다른 쪽에서 다시 모이면 과립이 많이 보이는 위치가 바뀐다. 이 연구에서는 배아의 극성과 연결된 조건 차이가 뒤쪽의 응축을 유리하게 했다. 과립의 분포가 바뀌는 과정을 실제 입자 수송과 용해·재형성으로 나누어 조사한 사례다.
생체분자 응축체(biomolecular condensate)라는 말은 이러한 국소적 농축 구조를 논할 때 쓰인다. P 과립의 액체와 비슷한 성질은 과립의 융합과 변형, 용해·응축을 관찰한 결과에서 나왔다. 형광 영상의 밝기는 표지한 성분의 분포를 보여 주며, 성분의 교환과 구조의 변형을 시간에 따라 관찰한 자료가 물성을 설명하는 근거로 더해진다.
세포의 상태에 따라 달라지는 물성
세포질의 움직임은 에너지 공급과 화학적 환경의 영향을 받는다. Munder 등의 2016년 연구는 효모를 비롯한 진핵생물에서 에너지 고갈과 휴면 진입에 따른 변화를 조사했다. 연구진은 소기관과 외부에서 유래한 추적 입자의 이동성이 낮아지는 현상을 관찰하고, 세포질의 산도와 단백질의 조립 상태를 함께 살폈다.
이 실험에서 세포질의 산성화는 여러 단백질의 큰 구조 형성과 연결되었다. 입자의 이동은 제한되고 세포질은 고체와 비슷한 역학적 성질을 나타냈다. 연구진은 입자의 이동 양상과 세포의 역학적 반응을 통해 이 상태 변화를 조사했다.
pH는 단백질의 전하 상태와 상호작용에 영향을 줄 수 있다. 연구에서는 산도 변화에 따른 조립과 세포질의 기계적 안정성, 불리한 환경에서의 생존을 연결했다. 조건을 되돌렸을 때 회복되는 성질도 관찰했다. 이렇게 세포 내부의 물성을 고정된 재료 상수로 두지 않고 생리적 상태와 연결해 조사할 수 있다.
이 연구의 실험 대상에는 출아효모와 분열효모, 사회성 아메바인 Dictyostelium이 포함되었다. 에너지 고갈과 산도 조절에 대한 반응은 이러한 대상과 조건에서 확인한 결과다. 성장 중인 상태와 휴면에 들어가는 상태를 비교하면서, 세포질의 성질을 결정하는 조건에 세포 자신의 활동도 포함됨을 조사했다.
영상의 세포질과 시험관의 세포질액
현미경에서는 세포의 구조와 표지한 분자의 분포를 본다. 생화학 실험에서는 세포를 깨뜨리고 성분을 나누어 효소의 활성이나 분자의 양을 잴 수 있다. 세포 안에서의 위치와 분리한 뒤의 반응성을 연결하려면 두 종류의 관찰이 필요하다. 분리 과정은 주변 성분과의 접촉, 농도와 공간 배열도 바꾸기 때문이다.
세포 분획(cell fractionation)에서는 파쇄한 세포의 혼합물을 원심분리해 성분을 나눈다. 침전되는 속도에는 입자의 크기·밀도와 실험 조건이 관여한다. 원심력과 시간을 달리하면 핵처럼 큰 구조, 소기관, 작은 막 조각과 입자들을 단계적으로 분리할 수 있다. 한 단계에서 얻은 침전에는 여러 성분이 섞일 수 있어 분획의 이름이 곧 완전한 순도를 뜻하지는 않는다.
소포체가 파쇄되면 막 조각이 다시 닫혀 작은 소포를 만들 수 있다. 실험에서 미세소체(microsome)라 부르는 분획에는 이런 소포가 포함된다. 막과 입자성 성분을 침전시킨 뒤 남는 수용성 상층액은 세포질액 분획으로 다룬다. 이것은 살아 있는 세포 속 환경을 분리 절차로 얻은 시료이며, 원래의 농도와 배치가 그대로 보존되었다는 뜻은 아니다.
FRAP은 표지한 분자의 교환과 이동을, 입자 추적은 시간에 따른 위치 변화를, 분획 실험은 분리된 성분의 조성과 활성을 측정한다. 같은 세포질을 조사해도 얻는 값은 다르다. 원고나 논문에서 “세포질에 존재한다”는 결과를 읽을 때, 그 근거가 영상의 위치인지 분획의 검출인지에 따라 남는 질문도 달라진다. 분획에서 검출한 효소의 활성을 살아 있는 세포 속 반응 위치와 연결하려면 위치 표지와 분획 순도 등의 자료가 더해진다.
무엇을 측정해 얻은 결과인가
| 방법 | 직접 관찰·측정하는 것 | 해석에 필요한 조건 |
|---|---|---|
| 형광 영상 | 표지된 성분의 위치와 신호 | 표지 대상, 해상도, 정지 영상·시계열 구분 |
| FRAP | 표백 영역의 신호 회복 | 관찰 시간, 회복 비율, 이동 모형 |
| 입자 추적 | 시간에 따른 탐침의 위치 | 탐침 크기·결합 성질, 촬영 간격 |
| 세포 분획 | 분리한 시료의 조성·활성 | 파쇄·원심분리 조건, 분획 순도 |
다시 짚어 보기
미토콘드리아는 세포질에 포함될까? 그 기질은 세포질액일까?
미토콘드리아는 핵 바깥에 있는 세포질 소기관이다. 미토콘드리아 기질은 내막으로 구분된 내부 공간이므로 세포질액과 구별한다.
해당 절로 돌아가기 ↑같은 세포에서 작은 분자와 큰 입자의 이동이 다르게 변할 수 있을까?
입자의 크기와 결합 성질에 따라 주변 구조의 영향을 다르게 받는다. 리보솜 농도를 조절한 연구에서도 큰 GEM 입자와 작은 GFP 탐침의 이동 변화가 달랐다.
해당 절로 돌아가기 ↑세포질을 이동하는 소포 안의 단백질은 세포질액에 노출될까?
소포 내부에 실린 단백질은 운반 중에도 막으로 구분될 수 있다. 소포 표면의 세포질 쪽 단백질과 내강의 화물은 서로 다른 환경에 놓인다.
해당 절로 돌아가기 ↑과립이 한쪽에 많아지는 데에는 어떤 과정이 관여할까?
입자가 실제로 운반되는 경우 외에, 한쪽에서 용해되고 다른 쪽에서 응축되는 과정도 분포를 바꿀 수 있다. 선충 P 과립 연구는 용해·응축의 위치 차이를 조사했다.
해당 절로 돌아가기 ↑세포질액 분획에서 검출한 효소만으로 세포 안의 정확한 위치를 알 수 있을까?
분획에는 다른 성분이 섞일 수 있고 파쇄 과정에서 공간 배열도 바뀐다. 살아 있는 세포의 위치와 연결하려면 분획 순도와 위치 표지 등의 자료가 더 필요하다.
해당 절로 돌아가기 ↑이어서 읽기
자료와 사료
자료 확인·초판 발행 2026.10.01. 기본 구획과 대사·수송은 교재의 해당 절로 대조했다. 개별 연구는 서지에 표시한 공개 본문·초록 범위에서 확인했다. 비교표는 본문의 근거를 바탕으로 편집했고, 형광 영상의 표본과 표지 정보는 도판에 표시했다.
- 세포질과 막성 구획
Alberts B, et al. Molecular Biology of the Cell. 4th ed. Garland Science; 2002. The Compartmentalization of Cells. 공개 검색에서 제공된 관련 본문 대조.
인용 절 1 · 6 - The Molecular Composition of Cells
Cooper GM. The Cell: A Molecular Approach. 2nd ed. Sinauer Associates; 2000. The Molecular Composition of Cells. 공개 검색에서 제공된 관련 본문 대조.
인용 절 2 - Metabolic Energy
Cooper GM. The Cell: A Molecular Approach. 2nd ed. Sinauer Associates; 2000. Metabolic Energy. 공개 검색에서 제공된 관련 본문 대조.
인용 절 6 - The Cytoskeleton and Cell Movement
Cooper GM. The Cell: A Molecular Approach. 2nd ed. Sinauer Associates; 2000. The Cytoskeleton and Cell Movement. 공개 검색에서 제공된 관련 본문 대조.
인용 절 5 - Microtubule Motors and Movements
Cooper GM. The Cell: A Molecular Approach. 2nd ed. Sinauer Associates; 2000. Microtubule Motors and Movements. 공개 검색에서 제공된 관련 본문 대조.
인용 절 5 - The Endoplasmic Reticulum
Cooper GM. The Cell: A Molecular Approach. 2nd ed. Sinauer Associates; 2000. The Endoplasmic Reticulum. 공개 검색에서 제공된 관련 본문 대조.
인용 절 6 - Tools of Cell Biology: Subcellular Fractionation
Cooper GM. The Cell: A Molecular Approach. 2nd ed. Sinauer Associates; 2000. Tools of Cell Biology: Subcellular Fractionation. 공개 검색에서 제공된 관련 본문 대조.
인용 절 9 - 세포 파쇄와 분획의 범위
Alberts B, et al. Molecular Biology of the Cell. 4th ed. Garland Science; 2002. Fractionation of Cells. 공개 검색에서 제공된 분획 절 대조.
인용 절 9 - 형광 덱스트란으로 측정한 세포질 내 확산
Luby-Phelps K, Taylor DL, Lanni F. Probing the structure of cytoplasm. J Cell Biol. 1986;102(6):2015–2022. doi:10.1083/jcb.102.6.2015. 공개 초록 대조.
인용 절 3 · 9 - 리보솜 농도와 크기별 입자 이동
Delarue M, et al. mTORC1 controls phase separation and the biophysical properties of the cytoplasm by tuning crowding. Cell. 2018;174(2):338–349.e20. doi:10.1016/j.cell.2018.05.042. 공개 저자 원고의 요약·서론·해당 결과와 그림 3 설명 대조.
인용 절 2 · 4 - 선충 P 과립의 용해와 응축
Brangwynne CP, et al. Germline P granules are liquid droplets that localize by controlled dissolution/condensation. Science. 2009;324(5935):1729–1732. doi:10.1126/science.1172046. 공개 초록 대조.
인용 절 7 - 산성화와 세포질의 물성 변화
Munder MC, et al. A pH-driven transition of the cytoplasm from a fluid- to a solid-like state promotes entry into dormancy. eLife. 2016;5:e09347. doi:10.7554/eLife.09347. 공개 초록·그림 설명과 검색 본문 발췌 대조.
인용 절 8 - 광표백 뒤 형광 회복을 이용한 이동 측정
Axelrod D, Koppel DE, Schlessinger J, Elson E, Webb WW. Mobility measurement by analysis of fluorescence photobleaching recovery kinetics. Biophys J. 1976;16(9):1055–1069. doi:10.1016/S0006-3495(76)85755-4. 공개 초록 대조.
인용 절 3 · 9 - 세포골격 형광 영상의 표본·표지 정보
ImageJ sample image, FluorescentCells. Molecular Probes 표본 슬라이드의 소 폐동맥 내피세포. DAPI 핵, BODIPY FL 튜불린, Texas Red-X phalloidin F-actin. 원 제공처의 채널 설명 확인. 이미지 파일과 권리 정보는 도판에 별도 표시.
인용 절 5