미토콘드리아 Mitochondrion
미토콘드리아는 두 겹의 막으로 반응 공간을 나누고, 전자의 흐름을 안쪽막의 양성자 기울기로 바꾸어 ATP 합성과 여러 세포 기능에 연결한다. 자체 DNA를 지니지만 구성과 유지의 대부분은 핵 유전자와 세포질의 단백질 합성에 의존한다.
콩알 하나가 아니라 이어지고 갈라지는 소기관
미토콘드리아(mitochondrion; 복수 mitochondria)는 진핵세포 안의 이중막 소기관이다. 교과서에서는 흔히 타원 하나로 그리지만, 살아 있는 세포에서는 짧은 막대·가지·긴 관과 서로 이어진 망이 함께 나타난다. 형태와 위치는 세포 종류, 대사 상태, 세포골격과 다른 소기관의 접촉에 따라 달라진다.
골격근처럼 ATP 사용이 큰 조직에서 미토콘드리아가 많다는 설명은 출발점일 뿐이다. 마우스 골격근의 3차원 관찰에서는 미토콘드리아가 근원섬유와 모세혈관 주변에 서로 다른 배열을 이루고, 막전위가 망을 따라 전달되는 양상이 측정됐다. 이 결과를 모든 세포에서 하나의 연속된 망이 존재한다는 뜻으로 넓히지는 않는다.
미토콘드리아는 융합과 분열을 거친다. 바깥막 융합에는 MFN1·MFN2, 안쪽막 융합과 크리스타 유지에는 OPA1, 분열에는 세포질에서 막으로 모이는 DRP1이 대표적으로 관여한다. 융합을 언제나 건강, 분열을 언제나 손상으로 대응시키면 물질 혼합·분포·증식·제거 준비처럼 두 과정이 맡는 여러 기능을 놓치게 된다.
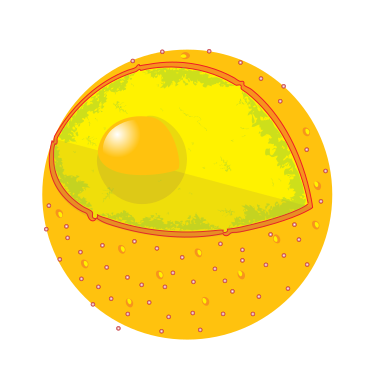
두 막과 크리스타를 나눈 구조 설명도
Mariana Ruiz Villarreal(LadyofHats) · 무표기 파생본 2013 · Public domain · 이용 조건
바깥막과 안쪽막 사이에 생기는 네 공간
바깥막(outer mitochondrial membrane)은 소기관의 외곽을 두르고, 안쪽막(inner mitochondrial membrane)은 그 안에서 기질을 감싼다. 두 막 사이에는 막사이공간(intermembrane space)이 있다. 바깥막에는 작은 대사물질과 이온의 통로가 될 수 있는 VDAC가 있지만, 안쪽막은 많은 이온과 대사물질이 저절로 지나는 것을 강하게 제한한다.
기질(matrix)에는 피루브산 탈수소효소 복합체와 시트르산회로의 여러 효소, mtDNA와 미토리보솜이 놓인다. 안쪽막에는 전자전달계, ATP 합성효소, ADP·ATP와 인산을 옮기는 운반체가 자리한다. 같은 소기관 안에서도 반응의 위치와 막을 건너는 이동이 따로 정해진다.
크리스타(crista; 복수 cristae)는 안쪽막이 기질 쪽으로 들어가 이룬 구획이다. 크리스타 막은 좁은 크리스타 연결부를 통해 안쪽 경계막과 이어진다. 마우스 배아 섬유아세포의 제자리 cryo-전자단층촬영에서는 판상·관상 등 여러 형태와 OPA1 상태에 따른 배열 차이가 관찰됐다. 크리스타를 고정된 주름이나 단순한 표면적 증가 장치로만 그리기 어려운 까닭이다.
두 막이 나누는 공간과 구조
| 구획·구조 | 대표 성분·과정 | 경계와 연결 |
|---|---|---|
| 바깥막 | VDAC, 단백질 수입의 TOM 복합체 | 세포질과 막사이공간 사이 |
| 막사이공간 | 전자전달계가 내보낸 H⁺가 축적되는 쪽 | 바깥막과 안쪽막 사이 |
| 안쪽 경계막·크리스타 막 | 전자전달계, ATP 합성효소, 여러 운반체 | 기질을 감싸며 크리스타 연결부로 이어짐 |
| 기질 | 피루브산 산화, 시트르산회로의 여러 효소, mtDNA·미토리보솜 | 안쪽막 안의 수용성 구획 |
탄소의 산화가 전자 운반체로 모이는 곳
포도당을 피루브산으로 나누는 해당과정은 세포질액에서 일어난다. 피루브산이 미토콘드리아 기질로 들어오면 피루브산 탈수소효소 복합체가 아세틸-CoA로 바꿀 수 있다. 지방산에서 유래한 탄소도 여러 단계를 거쳐 아세틸-CoA와 전자 운반체를 만든다. 미토콘드리아는 영양소 자체를 그대로 ATP로 바꾸는 상자가 아니다.
아세틸-CoA의 탄소는 시트르산회로(citric acid cycle; TCA cycle)에서 산화되며 이산화탄소가 나온다. 이 과정에서 만들어진 NADH는 전자를 복합체 I로 전달한다. Succinate dehydrogenase의 FAD를 거친 전자는 CoQ로 전달되며, 이 효소는 시트르산회로에 참여하는 동시에 안쪽막의 복합체 II이기도 하다.
세포가 쓰는 탄소원과 산소 공급, 세포 종류에 따라 각 경로의 몫은 달라진다. 산소가 전자전달계의 마지막 전자받개라는 사실과, 산소 원자가 영양소 탄소의 이산화탄소로 곧바로 바뀐다는 설명은 서로 다른 명제다. 이산화탄소의 탄소는 기질 대사의 탈탄산 반응에서 나온다.
탄소 산화와 전자 전달이 만나는 위치
| 과정 | 주요 위치 | 전자전달계와의 연결 |
|---|---|---|
| 해당과정 | 세포질액 | 생성된 세포질 NADH의 전자는 셔틀을 통해 연결될 수 있음 |
| 피루브산 산화 | 기질 | 아세틸-CoA와 NADH 생성 |
| 시트르산회로 | 주로 기질 | NADH 생성, succinate dehydrogenase의 전자는 CoQ로 전달 |
| 복합체 II | 안쪽막 | 시트르산회로의 효소이자 전자전달계의 진입점 |
전자전달계가 양성자 기울기를 만든다
NADH에서 온 전자는 복합체 I로, succinate dehydrogenase 반응에서 온 전자는 복합체 II를 통해 ubiquinone(coenzyme Q; CoQ)으로 전달될 수 있다. CoQ는 전자를 복합체 III로 옮기고, cytochrome c가 다시 복합체 IV로 나른다. 복합체 IV에서 산소는 전자를 받아 물 생성에 참여한다.
전자 이동에서 나온 자유에너지와 결합해 복합체 I·III·IV는 기질 쪽의 H⁺를 막사이공간 쪽으로 옮긴다. 복합체 II는 전자를 CoQ로 보내지만 양성자를 막 건너 펌프하지 않는다. 따라서 NADH와 복합체 II를 거친 전자가 같은 수의 양성자 이동을 만드는 것은 아니다.
안쪽막을 사이에 생기는 양성자 구동력(proton-motive force)에는 전하 차이에 따른 막전위와 H⁺의 화학적 농도 차이가 함께 들어간다. 전자전달계는 ATP를 직접 붙여 만드는 장치가 아니라, 먼저 이 전기화학적 기울기를 형성한다.
두 전자 진입점과 하나의 마지막 전자받개
- 첫 진입점NADH → 복합체 I
- 두 경로가 합류CoQ
- cytochrome c로 전달복합체 III
- O₂가 전자를 받아 H₂O 생성복합체 IV
다른 진입점: succinate → 복합체 II → CoQ. 복합체 I·III·IV는 H⁺ 이동과 결합하지만 복합체 II는 H⁺를 막 건너 펌프하지 않는다.
ATP 합성효소가 기울기의 에너지를 돌려 쓴다
ATP 합성효소(F₁F₀-ATP synthase; complex V)는 안쪽막을 가로지르는 부분과 기질 쪽 촉매 부분으로 이루어진 회전성 분자기계다. H⁺가 막사이공간 쪽에서 기질 쪽으로 이동할 때 막 부분의 회전과 촉매부의 형태 변화가 결합되고, ADP와 무기인산에서 ATP가 합성된다.
합성된 ATP가 세포질에서 쓰이려면 안쪽막의 ADP/ATP 운반체가 ATP와 ADP를 교환하고, 인산도 별도의 운반 경로로 들어와야 한다. 전자전달, 양성자 기울기, ATP 합성, 대사물질 수송은 이어져 있지만 같은 반응은 아니다.
포도당 한 분자에서 얻는 ATP를 언제나 하나의 정수로 고정하면 세포질 NADH를 안으로 전달하는 셔틀, 양성자 누출, 대사물질 수송과 세포 조건의 차이가 사라진다. 이 항목은 특정 조직의 ATP 수율을 한 숫자로 제시하지 않고, 전자 이동과 기울기 형성, ATP 합성의 결합 관계를 다룬다.
산화적 인산화에서 구분해야 할 단계
| 단계 | 일어나는 변화 | 직접 담당하는 장치 |
|---|---|---|
| 전자 전달 | 전자가 산소까지 이동 | 복합체 I–IV, CoQ, cytochrome c |
| 기울기 형성 | H⁺의 전기화학적 차이 생성 | 복합체 I·III·IV |
| ATP 합성 | H⁺ 흐름과 ADP·인산의 결합 | ATP 합성효소 |
| 대사물질 교환 | ATP·ADP·인산의 막 통과 | 안쪽막의 전용 운반체 |
작은 유전체와 핵 유전자가 함께 소기관을 만든다
사람 미토콘드리아 기준 유전체 NC_012920.1은 16,569 염기쌍의 원형 이중가닥 DNA다. 37개 유전자 가운데 13개는 산화적 인산화 복합체의 단백질 소단위를, 22개는 tRNA를, 2개는 rRNA를 암호화한다. mtDNA는 기질에서 단백질과 함께 핵양체(nucleoid)를 이루며 한 세포에 여러 사본이 존재한다.
13개 단백질만으로 전자전달계와 ATP 합성효소가 만들어지는 것은 아니다. 미토콘드리아 단백질의 대부분은 핵 유전자에서 전사되고 세포질 리보솜에서 번역된 뒤 수입된다. 대표적인 기질 표적 단백질은 바깥막 TOM과 안쪽막 TIM 복합체를 거치지만, 모든 미토콘드리아 단백질이 한 종류의 신호나 같은 수입 경로를 쓰지는 않는다.
미토콘드리아 안의 리보솜은 mtDNA에서 전사된 RNA를 사용해 13개 단백질을 합성한다. mtDNA 복제·전사·번역에 필요한 장치의 많은 구성원도 핵 유전자에서 온다. 자체 DNA가 있다는 사실은 오늘날의 미토콘드리아가 세포와 독립해 증식·생존할 수 있다는 뜻이 아니다.
유전체와 세균 계통의 비교는 미토콘드리아의 세균 조상을 지지한다. 오랜 진화 동안 많은 유전자가 소실되거나 핵으로 옮겨졌고, 현대 미토콘드리아 단백질체에는 서로 다른 진화적 기원을 가진 성분이 섞여 있다. 내공생 기원은 현재 소기관을 세포 안의 살아 있는 세균으로 부르는 설명과 구별된다.
사람 mtDNA가 맡는 몫과 핵 유전자의 몫
| 유래 | 사람에서 확인되는 범위 | 소기관으로 이어지는 방식 |
|---|---|---|
| 미토콘드리아 DNA | 13개 단백질 소단위, 22개 tRNA, 2개 rRNA | 기질의 전사·번역 장치에서 발현 |
| 핵 DNA | 미토콘드리아 단백질의 대부분 | 세포질에서 번역된 뒤 여러 수입 경로를 거침 |
융합·분열·미토파지가 구성 성분을 돌본다
융합은 인접한 미토콘드리아의 바깥막과 안쪽막을 차례로 합치고, 분열은 막을 조여 둘 이상의 단위로 나눈다. 두 과정은 mtDNA와 단백질·지질의 분포, 세포 안 이동과 소기관 수의 조절에 연결된다. 형태가 길거나 짧다는 관찰만으로 호흡 능력이나 손상 정도를 확정할 수는 없다.
미토파지(mitophagy)는 미토콘드리아 성분을 선택적으로 자가포식계와 리소좀 분해로 보내는 여러 경로를 가리킨다. 막전위가 크게 떨어진 미토콘드리아 표면에 PINK1이 축적되고 Parkin이 관여하는 경로가 널리 연구됐지만, BNIP3·NIX·FUNDC1 같은 수용체가 관여하는 PINK1–Parkin 비의존 경로도 보고되어 있다.
PINK1–Parkin 기전의 많은 세부는 단백질 과발현과 CCCP 같은 약물로 급성 탈분극을 일으킨 배양세포에서 정립됐다. 동물과 사람 조직의 기저 미토파지를 같은 속도와 우세 경로로 단정하기 어렵다. 손상 성분의 절단·소포 운반·단백질 분해와 소기관 전체의 미토파지도 서로 다른 규모의 품질 관리다.
같은 미토콘드리아가 세포마다 다르게 놓인다
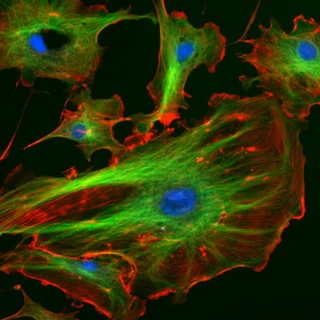
미토콘드리아의 수와 배치는 세포 기능과 함께 달라진다. 골격근에서는 근원섬유와 혈관 주변에 미토콘드리아가 특수하게 배열될 수 있다. 배양한 내피세포의 형광 영상에서 보이는 가는 빨간 구조도 고정된 콩 모양의 목록보다 세포 안 분포를 잘 드러내지만, 이 사진만으로 크리스타나 호흡 능력을 판독할 수는 없다.
Cytochrome c는 평상시 안쪽막 전자전달에 참여한다. 특정 세포자멸사 신호에서 BAX·BAK가 관여해 바깥막의 투과성이 커지면 cytochrome c 등이 세포질로 방출되고 caspase 활성 경로에 연결될 수 있다. 따라서 미토콘드리아를 ATP 합성만 맡는 구조로 설명하면 이 절에서 확인한 세포사멸 신호 같은 다른 기능을 가리게 된다.
미토콘드리아 질환은 mtDNA와 핵 DNA의 병적 변이 모두에서 생길 수 있다. 한 세포에 정상 mtDNA와 변이 mtDNA가 섞이는 이질성(heteroplasmy)의 비율은 조직과 시간에 따라 다를 수 있다. 2024년 체계적 고찰에서도 생화학적 기능 저하의 역치는 변이·조직·측정법에 따라 달라졌으며, 60%나 80% 같은 하나의 비율을 모든 변이에 적용할 근거는 부족했다.
미토콘드리아의 모양, mtDNA 변이 비율, 호흡사슬 효소 활성과 사람의 증상은 서로 다른 측정값이다. 같은 변이라도 침범 조직과 이질성, 핵 유전 배경 등에 따라 임상 양상이 달라질 수 있다. 한 장의 현미경 사진이나 한 번의 유전자 검출만으로 소기관 전체의 기능과 질환의 중증도를 대신하지 않는다.
배양 내피세포 안의 미토콘드리아 분포
Erin Rod · 2019 · CC BY 4.0 · 이용 조건
다시 짚어 보기
미토콘드리아의 바깥막과 안쪽막은 물질 이동에서 어떻게 다른가?
바깥막에는 VDAC 같은 통로가 있어 작은 대사물질과 이온이 드나들 수 있다. 안쪽막은 많은 물질의 자발적 통과를 제한하고 전용 운반체를 사용해 양성자 구동력과 기질의 조성을 유지한다.
해당 절로 돌아가기 ↑복합체 II가 전자전달계에 속하면서도 다른 점은 무엇인가?
Succinate에서 유래한 전자를 CoQ로 전달하지만 복합체 I·III·IV와 달리 H⁺를 막 건너 펌프하지 않는다.
해당 절로 돌아가기 ↑산소는 산화적 인산화에서 어느 단계에 쓰이는가?
전자전달계의 마지막에서 복합체 IV가 전달한 전자를 받고 H⁺와 함께 물 생성에 참여한다. ATP 합성효소가 산소를 직접 소비하는 것은 아니다.
해당 절로 돌아가기 ↑사람 mtDNA의 37개 유전자는 무엇을 암호화하는가?
산화적 인산화 복합체의 단백질 소단위 13개, tRNA 22개, rRNA 2개다. 나머지 미토콘드리아 단백질의 대부분은 핵 유전자에서 유래한다.
해당 절로 돌아가기 ↑분열한 미토콘드리아는 모두 손상된 것인가?
아니다. 분열은 정상적인 분포·증식·품질 관리에도 관여한다. 모양 하나만으로 기능이나 제거 대상을 확정할 수 없다.
해당 절로 돌아가기 ↑병적 mtDNA 변이의 비율만으로 증상을 예측하기 어려운 까닭은 무엇인가?
변이 종류와 조직, 측정한 세포, 핵 유전 배경에 따라 기능 저하의 역치와 임상 양상이 달라질 수 있기 때문이다.
해당 절로 돌아가기 ↑이어서 읽기
자료와 사료
자료 확인·초판 작성 2026.10.05. 구조와 산화적 인산화는 교재·기관 자료를 대조했고, 크리스타·동역학·미토파지·질환은 원저와 검토 논문의 확인 범위를 구분했다. 동물·배양세포 결과를 모든 사람 조직에 그대로 넓히지 않았으며, 도판에는 관찰 자료와 설명도를 따로 표시했다.
- 미토콘드리아의 구조·대사·단백질 수입
Cooper GM. The Cell: A Molecular Approach. 2nd ed. Sinauer Associates; 2000. Mitochondria. NCBI Bookshelf NBK9896. 구조·구획·대사와 단백질 수입 관련 본문을 대조했다.
인용 절 1 · 2 · 3 · 5 - 산화적 인산화의 기전
Cooper GM. The Cell: A Molecular Approach. 2nd ed. Sinauer Associates; 2000. The Mechanism of Oxidative Phosphorylation. NCBI Bookshelf NBK9885. 전자전달·양성자 기울기·ATP 합성의 결합을 대조했다.
인용 절 4 · 5 - 전자전달계와 산화적 인산화
Clark MA, Douglas M, Choi J. Biology 2e. OpenStax; 2018. 7.4 Oxidative Phosphorylation. 복합체 I–IV, CoQ, cytochrome c와 산소의 위치 관계를 대조했다.
인용 절 3 · 4 - 살아 있는 구획으로서의 크리스타 구조
Fry MY, Navarro PP, Hakim P, et al. In situ architecture of Opa1-dependent mitochondrial cristae remodeling. EMBO J. 2024;43(3):391–413. doi:10.1038/s44318-024-00027-2. 마우스 배아 섬유아세포의 cryo-ET 원저와 기능 검사를 확인했다.
인용 절 2 - 사람 미토콘드리아 기준 유전체
NCBI Reference Sequence NC_012920.1. Homo sapiens mitochondrion, complete genome. 사람 mtDNA의 길이와 유전자 주석을 대조했다.
인용 절 6 - 미토콘드리아 단백질 합성
Kummer E, Ban N. Mechanisms and regulation of protein synthesis in mitochondria. Nat Rev Mol Cell Biol. 2021;22:307–325. doi:10.1038/s41580-021-00332-2. mtDNA 발현과 미토리보솜의 범위를 대조했다.
인용 절 6 - 핵 유래 미토콘드리아 단백질의 수입
Palmer CS, Anderson AJ, Stojanovski D. Mitochondrial protein import dysfunction: mitochondrial disease, neurodegenerative disease and cancer. FEBS Lett. 2021;595(8):1107–1131. doi:10.1002/1873-3468.14022. TOM·TIM을 비롯한 수입 경로의 현대적 범위를 대조했다.
인용 절 6 - 미토콘드리아의 진화적 기원
Gray MW. Mitochondrial evolution. Cold Spring Harb Perspect Biol. 2012;4(9):a011403. doi:10.1101/cshperspect.a011403. 세균 조상과 현대 미토콘드리아 단백질체의 복합적 기원을 대조했다.
인용 절 6 - 융합·분열과 미토콘드리아 동역학
Chan DC. Mitochondrial Dynamics and Its Involvement in Disease. Annu Rev Pathol. 2020;15:235–259. doi:10.1146/annurev-pathmechdis-012419-032711. MFN1/2·OPA1·DRP1과 융합·분열의 기능을 대조했다.
인용 절 1 · 7 - 미토파지의 경로와 사람 조직 연구
Picca A, Faitg J, Auwerx J, Ferrucci L, D’Amico D. Mitophagy in human health, ageing and disease. Nat Metab. 2023;5(12):2047–2061. doi:10.1038/s42255-023-00930-8. PINK1–Parkin 의존·비의존 경로와 측정 범위를 대조했다.
인용 절 7 - PINK1–Parkin 실험계의 범위
Han R, Liu Y, Li S, Li XJ, Yang W. PINK1-PRKN mediated mitophagy: differences between in vitro and in vivo models. Autophagy. 2023;19(5):1396–1405. doi:10.1080/15548627.2022.2139080. 과발현·급성 탈분극 세포실험과 생체 조건의 차이를 확인했다.
인용 절 7 - 골격근의 미토콘드리아 망 관찰
Glancy B, Hartnell LM, Malide D, et al. Mitochondrial reticulum for cellular energy distribution in muscle. Nature. 2015;523(7562):617–620. doi:10.1038/nature14614. 마우스 골격근의 3차원 구조·막전위 실험을 확인했다.
인용 절 1 · 8 - 병적 mtDNA 변이의 이질성과 생화학적 역치
Smith KK, Moreira JD, Wilson CR, et al. A systematic review on the biochemical threshold of mitochondrial genetic variants. Genome Res. 2024;34(3):341–365. doi:10.1101/gr.278200.123. 변이·조직별 역치 자료와 보편적 수치의 한계를 확인했다.
인용 절 8 - 일차성 미토콘드리아 질환 개요
Chinnery PF. Primary Mitochondrial Disorders Overview. GeneReviews®. Updated 2021 Jul 29. NCBI Bookshelf NBK1224. mtDNA·핵 DNA 원인과 임상적 이질성의 범위를 대조했다.
인용 절 8 - 미토콘드리아 바깥막 투과화와 세포자멸사
Czabotar PE, Garcia-Saez AJ. Mechanisms of BCL-2 family proteins in mitochondrial apoptosis. Nat Rev Mol Cell Biol. 2023;24(10):732–748. doi:10.1038/s41580-023-00629-4. BAX·BAK, 바깥막 투과화와 cytochrome c 방출의 범위를 대조했다.
인용 절 8