세포막 안팎의 전위차
막전위는 세포 안의 전위를 바깥에 대해 나타낸 값이다. 안쪽이 바깥보다 70 mV 낮으면 −70 mV로 적는다. 신경세포의 휴지막전위는 세포 종류와 측정 조건에 따라 달라진다. 휴지막전위 −70 mV, 역치 −55 mV, 정점 +30 mV로 그린 교과서 그림은 한 가지 예시이며, 모든 신경세포가 그 세 수치를 따라 움직이지는 않는다.[1]
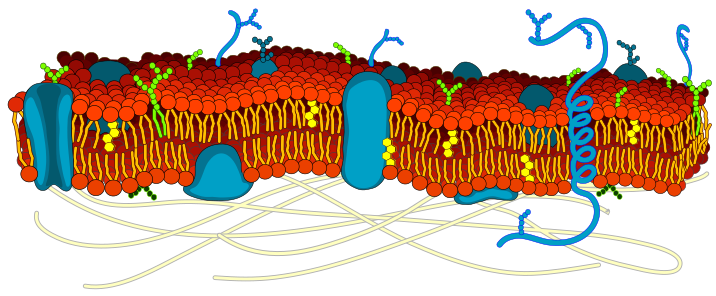
막전위가 생길 때 세포 안의 모든 액체가 음전하로 바뀌지는 않는다. 막의 양쪽 표면 가까이에 분리된 소량의 전하가 전위차를 만든다. 세포 안팎의 벌크 용액은 대체로 전기적 중성을 유지하며, 한 번의 활동전위에서 이동하는 이온은 전체 이온량의 작은 일부다.[4]
이 글은 빠른 Na⁺ 전류와 지연된 K⁺ 전류를 중심으로 신경세포 활동전위를 설명한다. 활동전위는 막전위가 짧은 시간에 크게 변한 뒤 회복하는 사건이다. 한 지점에서 그린 파형과 그 사건이 축삭을 따라 전파되는 과정은 뒤에서 따로 다룬다.
농도 차이와 전위차가 함께 이온을 움직인다
신경세포에서는 보통 K⁺ 농도가 안쪽에서 높고 Na⁺ 농도가 바깥에서 높다. K⁺ 통로가 열리면 농도 차이는 K⁺의 바깥 이동을 촉진하고, 음성인 세포 안의 전위는 양이온을 안쪽으로 끌어당긴다. 두 효과가 균형을 이뤄 해당 이온의 순이동이 없어지는 전위를 평형전위라고 한다.[3]
평형전위 E와 실제 막전위 V의 차이는 이온 전류의 구동력을 나타낸다. 전도도 g를 사용하는 단순한 표현은 I = g(V − E)다. 바깥 방향의 양전하 전류를 양수로 정하면 V가 E보다 낮을 때 전류는 음수, 곧 안쪽 방향이다. 전도도가 커져도 구동력이 0이면 순전류는 0이다.
| 개념 | 결정하는 것 | 구별할 점 |
|---|---|---|
| 평형전위 | 그 이온의 안팎 농도와 전하, 온도 | 한 이온의 순전류가 0이 되는 전위 |
| 휴지막전위 | 휴지 상태의 여러 이온 통로와 이온 기울기 | K⁺ 평형전위에 가까울 수 있으나 같은 값으로 고정되지 않음 |
| 전도도 | 주어진 조건에서 전류가 흐르는 정도 | 전류와 구동력의 관계에 쓰는 전기적 양 |
| 투과도 | 막을 통한 이온 이동의 용이성 | 여러 이온의 기여를 다루는 GHK 식 등에 쓰는 양 |
Nernst 식은 한 이온의 평형전위를 계산한다. 여러 이온에 투과성을 가진 막의 전위는 각 이온의 기여를 함께 고려한다. 휴지 상태에서 K⁺에 대한 투과성이 크면 막전위는 K⁺ 평형전위의 영향을 크게 받는다.[1]
역치와 Na⁺ 통로의 양성 되먹임
탈분극은 막전위가 덜 음성인 쪽으로 변하는 것이다. 막전위가 −70 mV에서 −60 mV가 되는 변화도 탈분극에 해당한다. 탈분극이 모두 활동전위로 이어지는 것은 아니다. 작은 시냅스 전위나 주입 전류가 만든 국소적인 변화는 활동전위를 유발하지 않고 사라질 수 있다.
막전위가 상승하면 전압개폐성 Na⁺ 통로의 활성화가 증가한다. 안쪽으로 흐르는 Na⁺ 전류가 탈분극을 더 키우고, 그 변화가 추가 통로의 활성화를 촉진한다. 이 되먹임이 재생적인 상승을 일으키는 조건이 역치다. 역치는 이온 통로의 상태와 직전 활동 이력 등에 영향을 받는다.[2]
같은 축삭을 같은 조건에서 자극하면 역치를 넘은 활동전위는 전형적인 파형을 갖는 전부 아니면 전무의 반응을 보인다. 더 강한 자극의 정보는 발화 빈도나 여러 신경세포의 동원 등으로 표현될 수 있다. 자극을 두 배로 늘렸다고 한 축삭의 활동전위 높이가 두 배로 증가하는 관계는 아니다.[1]
도판을 좌우로 밀어 전체 보기 ↔
Na⁺ 불활성화와 지연된 K⁺ 전류
탈분극이 지속돼도 Na⁺ 전류는 계속 커지지 않는다. 활성화된 Na⁺ 통로의 불활성화가 진행되면서 Na⁺ 전도도가 감소한다. 탈분극에 더 느리게 반응하는 K⁺ 통로의 활성화는 바깥 방향 K⁺ 전류를 증가시킨다. 이 두 변화가 막전위를 다시 음성인 쪽으로 돌린다.[2]
재분극은 탈분극 뒤 막전위가 휴지 수준을 향해 돌아가는 변화다. 이후 K⁺ 전도도가 한동안 높게 남으면 막전위가 휴지 수준보다 더 음성인 후과분극이 나타날 수 있다. K⁺ 통로의 종류와 다른 전류의 기여에 따라 파형과 후전위는 달라진다.
휴지 상태에서 적절한 탈분극에 반응할 수 있다.
탈분극에 따라 활성화가 증가하고 Na⁺ 전류가 흐른다.
탈분극이 지속돼도 전도하지 않으며 회복이 필요하다.
재분극과 시간 경과 → 불활성화에서 회복 → 다시 활성화 가능한 상태
도판을 좌우로 밀어 전체 보기 ↔
Na⁺ 통로의 닫힌 상태와 불활성화 상태는 기능적으로 구별된다. 휴지 상태의 닫힌 통로는 적절한 탈분극으로 활성화될 수 있다. 불활성화된 통로는 재분극과 시간이 경과하면서 회복해야 다시 활성화에 참여할 수 있다. 아래 불응기는 이 상태 변화를 포함해 설명한다.
절대 불응기와 상대 불응기
활동전위 직후 같은 막 구간은 곧바로 같은 반응을 반복할 수 없다. 절대 불응기에는 두 번째 활동전위를 유발할 수 없고, 상대 불응기에는 휴지 상태보다 강한 자극으로 활동전위를 유발할 수 있다. 두 구간의 길이는 통로 특성과 온도 등 조건에 따라 달라진다.[6]
| 구간 | 막과 통로의 상태 | 다음 자극에 대한 반응 |
|---|---|---|
| 절대 불응기 | 충분한 Na⁺ 통로가 다시 활성화할 수 있는 상태로 회복하지 못함 | 자극을 강화해도 그 구간에서 새 활동전위를 유발할 수 없음 |
| 상대 불응기 | Na⁺ 통로가 일부 회복했지만 흥분성 회복은 불완전하며 K⁺ 전도도가 높게 남을 수 있음 | 휴지 상태보다 강한 자극이 필요 |
| 회복 뒤 | 통로 상태와 막전위가 휴지 조건에 가까워짐 | 보통의 자극 조건으로 다시 발화 가능 |
상대 불응기를 후과분극만으로 설명하면 Na⁺ 통로의 회복 과정을 놓치게 된다. 호지킨·헉슬리 모형은 Na⁺ 불활성화와 지연된 K⁺ 전도도 증가가 함께 흥분성의 회복에 관여함을 보여준다. 막전위가 특정 값으로 돌아온 순간과 발화 능력이 완전히 회복한 순간도 반드시 일치하지 않는다.[5]
이온 기울기를 유지하는 ATP 소비
Na⁺/K⁺-ATPase는 ATP를 사용해 Na⁺ 3개를 바깥으로, K⁺ 2개를 안쪽으로 운반한다. 양전하가 한 개 더 바깥으로 이동하므로 펌프 자체도 전위에 직접 기여하며, Na⁺와 K⁺ 농도 기울기의 장기 유지에 관여한다.[4]
한 번의 활동전위가 빠르게 재분극하는 과정은 주로 통로를 통한 전류 변화로 설명한다. 펌프가 직전에 들어온 Na⁺를 모두 내보낸 다음에야 재분극하는 순서로 진행되지 않는다. 반복되는 활동에서 누적되는 이온 이동을 보상하고 농도 기울기를 유지하는 펌프의 역할은 별도로 이어진다.
국소전류와 인접 막의 활동전위
활동전위가 발생한 축삭 구간과 아직 휴지 상태인 인접 구간 사이에는 전위 차이가 생긴다. 축삭 안과 바깥을 통해 흐르는 국소전류가 인접 막을 충전하고 탈분극시킨다. 그곳이 역치에 도달하면 새로운 활동전위가 발생한다.[7]
수동적으로 퍼지는 전위 변화는 거리에 따라 줄어든다. 활동전위 전도에서는 흥분 가능한 막에서 반응이 재생되므로 정상적인 전도 조건에서 신호가 유지된다. 한 이온이 축삭의 시작에서 끝까지 이동해서 전달하는 과정으로 해석하지 않는다.
진행 중인 활동전위의 바로 뒤쪽 막은 불응 상태여서 되돌아오는 전류에 같은 반응을 보이기 어렵다. 축삭 중간을 인위적으로 자극해 양옆 막이 모두 흥분 가능한 경우에는 양방향으로 전파될 수 있다. 막의 흥분성과 통상적인 신호 전달 경로를 함께 고려해야 전도 방향을 설명할 수 있다.[9]
도약전도와 랑비에 결절
수초는 절간부 막의 전기적 특성을 바꾼다. 막을 통한 전류 누출을 줄이고 유효 막용량을 낮춰, 인접 부위를 탈분극시키는 데 필요한 전하량을 줄인다. Na⁺ 통로가 높은 밀도로 모인 랑비에 결절에서는 활동전위가 재생된다. 결절 사이에서 국소전류가 퍼지고 다음 결절에서 활동전위가 발생하는 전도를 도약전도라고 부른다.[10]
도판을 좌우로 밀어 전체 보기 ↔
전도 속도는 수초뿐 아니라 축삭 지름과 통로 특성, 온도 등에 영향을 받는다. 축삭 지름이 커지면 단위 길이당 축삭 내부의 저항이 낮아져 국소전류가 퍼지는 데 유리하다. 수초의 유무만으로 모든 신경의 속도를 하나씩 고정할 수는 없다.[7]
여러 축삭의 신호를 함께 기록한 복합활동전위는 각 섬유에서 생긴 전위가 기록 조건에 따라 합쳐진 결과다. 그 기록의 진폭에는 여러 섬유의 신호가 함께 반영된다. 참여한 섬유와 전도 속도의 분포, 기록 위치 등의 영향을 함께 받는다.[8]
호지킨·헉슬리가 전류에서 파형을 계산한 과정
전압고정법은 막전위를 정해진 수준에 유지하면서 필요한 전류를 측정하는 방법이다. 막전위가 변하는 활동전위를 관찰하는 방식과 달리, 전압을 통제한 상태에서 전류의 시간 경과를 살필 수 있다. 호지킨과 헉슬리의 1952년 논문 연작은 오징어 거대축삭의 Na⁺·K⁺ 전류를 분석했다.
그해의 종합 논문은 막용량에 따른 전류와 Na⁺·K⁺·누설 전류를 결합한 식을 제시했다. Na⁺ 전도도는 m³h, K⁺ 전도도는 n⁴에 비례하도록 두었다. m과 h는 각각 Na⁺ 활성화와 불활성화의 시간·전압 의존성을, n은 K⁺ 활성화를 표현한다. 이 변수들은 측정 전류에 맞춘 모형의 상태 변수다. 지수 3과 4를 실제 통로에 달린 문 세 개와 네 개의 직접 관찰로 옮길 수는 없다.[5]
논문의 전도도 변화 계수는 6.3°C 조건을 기준으로 기술됐다. 본문은 계산한 활동전위의 형태와 전도, 불응기를 관찰 결과와 비교하고 불일치도 논의한다. 이 글의 파형과 전도 그림은 그 수치를 다시 계산한 시뮬레이션이 아닌 정성적 개념도다.
휴지 상태의 이온 기울기, 탈분극에 따른 Na⁺ 활성화, Na⁺ 불활성화와 지연된 K⁺ 전류, 통로의 회복이 한 지점의 파형을 이룬다. 축삭을 따라서는 국소전류와 인접 막의 재생적 반응이 이어진다. 이 두 시간·공간 과정을 연결하면 활동전위와 신경 전도를 함께 설명할 수 있다.
자료와 검토 범위
신경세포의 빠른 Na⁺·K⁺ 활동전위를 중심으로 교재 설명과 1952년 원논문의 관련 절을 대조했다. 호지킨·헉슬리 종합 논문은 인쇄 쪽수 500–501, 518–519, 532–534, 542–544의 식·불응기·논의와 요약을 확인했다. 새로운 전기생리 실험이나 수치 시뮬레이션은 수행하지 않았다. 본문 세 도판은 자체 제작 개념도이며 정량 축척과 실제 통로 구조를 나타내지 않는다. 표지는 AI 생성 편집 삽화다.
함께 볼 개념
함께 읽을 기록
출처와 자료
- 휴지막전위·평형전위와 활동전위. 온라인 교재 설명 본문 확인. 전위의 정의, 여러 이온의 기여와 전부 아니면 전무 반응.
- Na⁺ 활성화·불활성화와 K⁺ 전류. 온라인 교재 설명 본문 확인. 통로 상태, 후과분극과 펌프의 역할.
- 휴지막전위의 이온 기초. 검색 서비스가 제공한 교재 본문 확인. 농도 기울기와 평형전위.
- 막의 전하 분리와 Na⁺/K⁺-ATPase. 검색 제공 관련 본문 확인. 벌크 용액과 막 전하, 펌프의 3:2 운반.
- 1952년 호지킨·헉슬리 종합 논문. 원문 PDF 관련 쪽수 확인. 전류 모형, 6.3°C 계수 조건, 불응기와 모형의 비교·한계.
- 절대·상대 불응기. 검색 제공 교재 본문 확인. 연속 발화와 통로 회복.
- 국소전류·수초와 활동전위의 전파. 온라인 교재 설명 본문 확인. 중간 자극, 수동적 확산과 재생, 축삭 지름·저항·용량.
- 단일 섬유와 복합활동전위. 초록 확인. 여러 섬유의 전위가 합쳐지는 기록과 섬유 분포의 영향에 한해 사용.
- 전기 자극에 따른 양방향 활동전위 전파. 검색 제공 말초신경 자극 관련 본문 확인. 자극된 신경의 양방향 전파 설명에 한해 사용.
- 수초 축삭과 결절의 이온 통로 분포. 검색 제공 관련 본문과 초록 확인. 수초의 절연·막용량과 결절의 Na⁺ 통로 집중을 교재와 대조.
전체 서지정보 10건
- Byrne JH. Neuroscience Online. Chapter 1: Resting Potentials and Action Potentials. UTHealth Houston. Revised 17 August 2026.
- Byrne JH. Neuroscience Online. Chapter 2: Ionic Mechanisms and Action Potentials. UTHealth Houston. Revised 17 August 2026.
- Purves D et al., editors. Neuroscience. 2nd ed. 2001. The Ionic Basis of the Resting Membrane Potential.
- Alberts B et al. Molecular Biology of the Cell. 4th ed. 2002. Ion Channels and the Electrical Properties of Membranes.
- Hodgkin AL, Huxley AF. 1952. A quantitative description of membrane current and its application to conduction and excitation in nerve. J Physiol. 117(4):500–544. doi:10.1113/jphysiol.1952.sp004764.
- Purves D et al., editors. Neuroscience. 2nd ed. 2001. The Refractory Period.
- Byrne JH. Neuroscience Online. Chapter 3: Propagation of the Action Potential. UTHealth Houston. Revised 17 August 2026.
- Stegeman DF, de Weerd JP, Eijkman EG. 1979. A volume conductor study of compound action potentials of nerves in situ: the forward problem. Biol Cybern. 33(2):97–111. doi:10.1007/BF00355258.
- Sahyouni R et al. 2019. Interfacing with the nervous system: a review of current bioelectric technologies. Neurosurg Rev. 42(2):227–241. doi:10.1007/s10143-017-0920-2. Online publication 2017.
- Suminaite D, Lyons DA, Livesey MR. 2019. Myelinated axon physiology and regulation of neural circuit function. Glia. 67(11):2050–2062. doi:10.1002/glia.23665.
문헌 검토일 2026.10.02
집필과 출처 안내